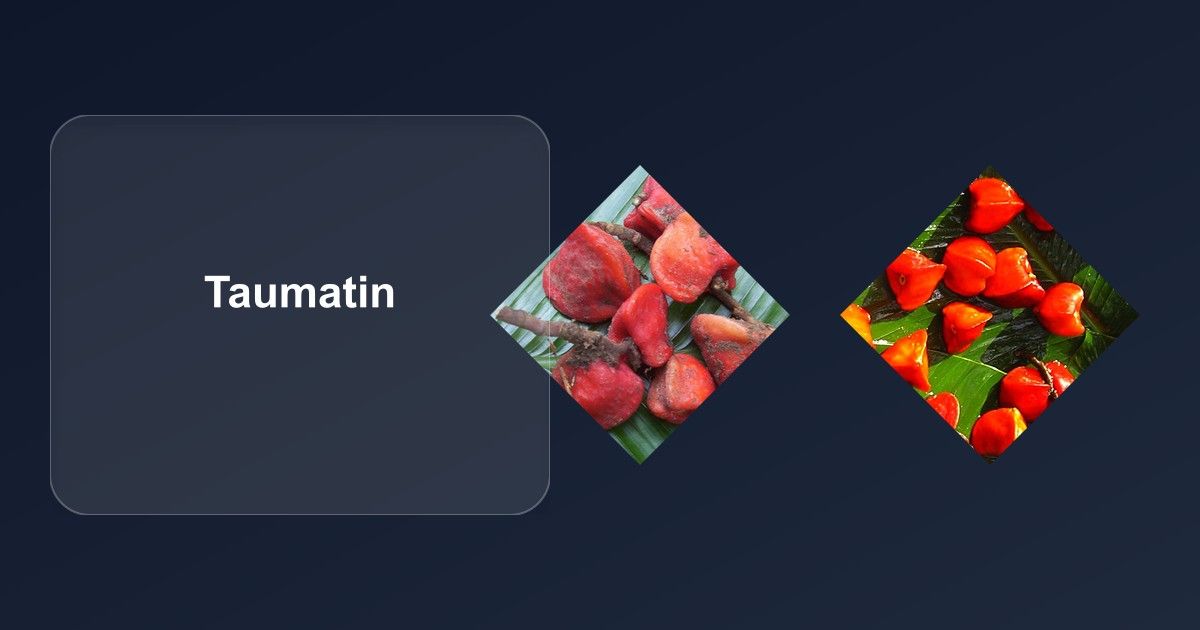
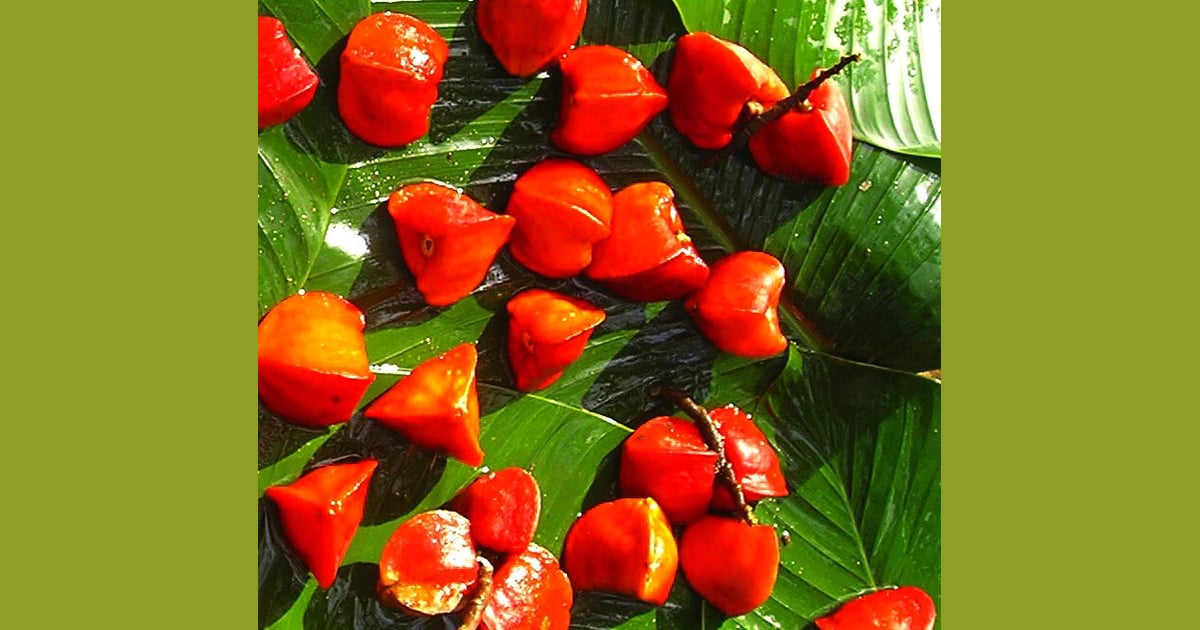
Taumatin merupakan pemanis alami berintensitas tinggi yang diekstraksi dari buah katemfe (Thaumatococcus daniellii), tanaman asli Afrika Barat. Berbeda dari pemanis umum seperti sukrosa (C12H22O11) atau aspartam, taumatin bukanlah molekul karbohidrat atau dipeptida sederhana, melainkan sebuah protein.
Klasifikasi kimianya sebagai protein menempatkannya dalam kategori makromolekul biologis yang kompleks, dengan fungsi dan sifat yang sangat ditentukan oleh struktur tiga dimensinya.
Tingkat kemanisan taumatin dapat mencapai 2.000 hingga 3.000 kali lebih manis daripada sukrosa pada basis berat yang sama, menjadikannya salah satu zat pemanis alami paling poten yang pernah ditemukan dan digunakan dalam industri makanan dan minuman.
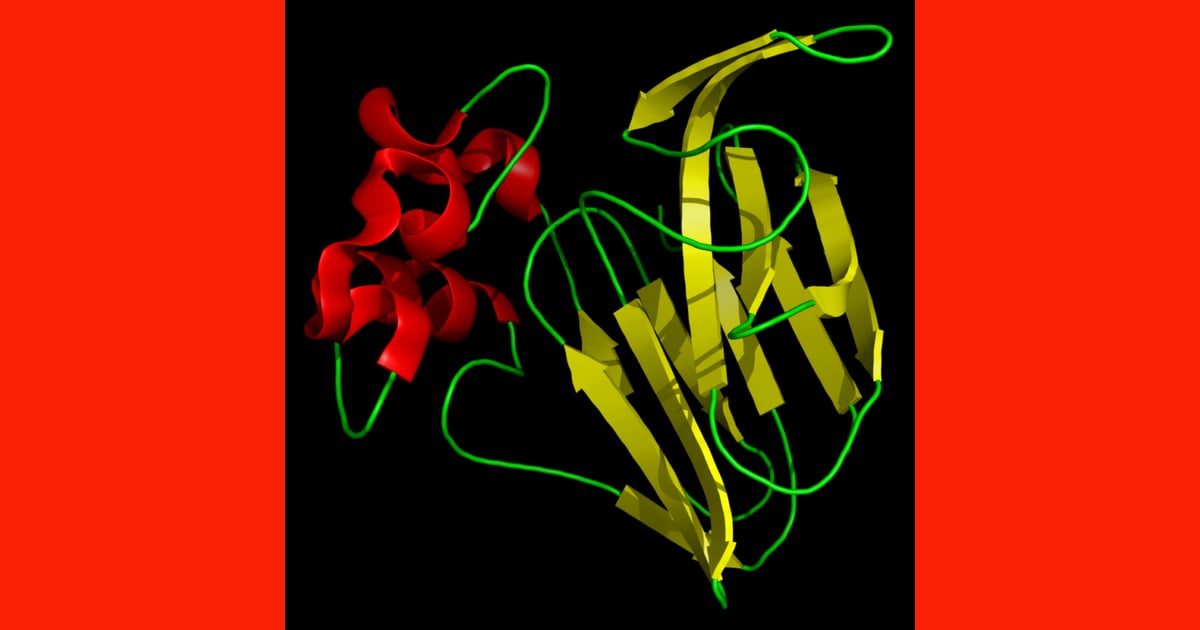
Secara struktural, taumatin merupakan polipeptida, yaitu polimer yang tersusun dari unit-unit monomer berupa asam amino yang dihubungkan oleh ikatan peptida. Terdapat beberapa varian taumatin, dengan Taumatin I dan Taumatin II sebagai yang paling umum. Taumatin I, yang paling banyak diteliti, terdiri dari 207 residu asam amino dalam satu rantai polipeptida tunggal.
Urutan spesifik dari asam-asam amino ini (struktur primer) menjadi fondasi bagi pembentukan struktur sekunder (seperti heliks-alfa dan lembar-beta) dan struktur tersier globular yang sangat kompleks. Struktur tiga dimensi inilah yang secara langsung bertanggung jawab atas kemampuannya berinteraksi dengan reseptor rasa manis di lidah manusia.
Karena statusnya sebagai protein, penulisan rumus kimia tunggal seperti pada senyawa kecil (misalnya, glukosa C6H12O6) menjadi tidak praktis dan kurang informatif. Namun, berdasarkan komposisi asam aminonya, formula empiris untuk Taumatin I dapat diperkirakan sebagai C968H1531N255O295S9, dengan massa molekul sekitar 22.2 kilodalton (kDa). Kehadiran atom sulfur (S) menunjukkan adanya asam amino metionin dan sistein.
Sembilan atom sulfur ini sangat signifikan karena delapan di antaranya membentuk empat ikatan disulfida internal yang krusial untuk menstabilkan lipatan tiga dimensi protein.
Hibridisasi atom-atom dalam kerangka taumatin mengikuti prinsip dasar kimia organik pada peptida. Atom karbon alfa (Cα) pada setiap residu asam amino (kecuali glisin) memiliki hibridisasi sp3, membentuk geometri tetrahedral. Sementara itu, atom karbon dalam gugus karboksil dan atom nitrogen dalam gugus amina yang membentuk ikatan peptida (-CO-NH-) memiliki hibridisasi yang mendekati sp2.
Hibridisasi sp2 ini menyebabkan gugus peptida bersifat planar dan kaku, yang membatasi rotasi bebas dan menjadi faktor penentu dalam pembentukan struktur sekunder protein yang teratur.
Ikatan kimia yang menyusun dan menstabilkan molekul taumatin bersifat heterogen. Ikatan kovalen merupakan ikatan utama yang membentuk rantai polipeptida, terdiri dari ikatan peptida antar asam amino dan ikatan disulfida (-S-S-) antar residu sistein. Ikatan disulfida ini memberikan stabilitas termal yang luar biasa pada molekul.
Selain itu, struktur tersiernya yang fungsional dipertahankan oleh serangkaian interaksi non-kovalen yang lebih lemah, termasuk ikatan hidrogen, interaksi hidrofobik, gaya van der Waals, dan ikatan ionik (jembatan garam) antara residu asam amino yang bermuatan positif (seperti lisin atau arginin) dan negatif (seperti aspartat atau glutamat).
Setelah memahami komposisi kimia fundamental dan jenis ikatan yang membentuk makromolekul ini, langkah selanjutnya yang esensial adalah menganalisis aspek stereokimia. Konfigurasi tiga dimensi yang presisi, termasuk kiralitas molekul, merupakan kunci untuk memahami mengapa taumatin memiliki aktivitas biologis yang begitu spesifik, yaitu kemampuannya untuk dikenali oleh reseptor rasa manis.
Interaksi Taumatin dengan Hidroksiapatit Enamel Gigi
Salah satu pertimbangan penting dalam penggunaan aditif pangan adalah dampaknya terhadap kesehatan gigi, khususnya terkait potensi erosi enamel. Enamel gigi tersusun utamanya dari mineral kristalin yang disebut hidroksiapatit, dengan rumus kimia Ca10(PO4)6(OH)2. Proses demineralisasi atau pelarutan kristal ini terjadi dalam lingkungan asam.
Berbeda dengan gula seperti sukrosa (C12H22O11) yang dimetabolisme oleh bakteri mulut menjadi asam, taumatin bersifat non-kariogenik karena tidak dapat difermentasi oleh mikroflora oral. Namun, interaksinya perlu dikaji dalam konteks formulasi produk.
Taumatin sering digunakan pada produk minuman dengan pH rendah, seperti minuman berkarbonasi atau jus buah yang mengandung asam sitrat (C6H8O7) atau asam fosfat (H3PO4).
Dalam medium asam ini, ion hidrogen (H+) dari asam tersebut akan bereaksi dengan gugus hidroksida (OH–) dan fosfat (PO43-) dari matriks hidroksiapatit, menyebabkan disosiasi mineral dan pelepasan ion kalsium (Ca2+) ke dalam larutan.
Dengan demikian, potensi erosi enamel tidak disebabkan oleh molekul taumatin itu sendiri, melainkan oleh sifat asam dari medium pelarutnya.
Meskipun taumatin tidak berkontribusi secara langsung pada demineralisasi kimiawi, stabilitasnya yang tinggi pada rentang pH asam justru menjadi alasan utama penggunaannya dalam produk-produk tersebut.
Sifatnya sebagai protein yang dapat teradsorpsi pada permukaan, termasuk pada pelikel saliva di permukaan gigi, membuka ranah penelitian lain mengenai bagaimana interaksi ini dapat memodulasi lingkungan mikro enamel.
Pemahaman mengenai stabilitas termal dan kimia taumatin menjadi langkah selanjutnya untuk mengevaluasi siklus hidupnya dalam sebuah produk, mulai dari pemrosesan hingga konsumsi.
Mekanisme Pemutusan Ikatan (Hidrolisis) Taumatin dalam Pelarut Air
Hidrolisis taumatin merujuk pada reaksi kimia pemutusan ikatan peptida (-CO-NH-) yang menyusun tulang punggung polipeptidanya, dengan melibatkan molekul air (H2O). Secara termodinamika, reaksi hidrolisis ini bersifat spontan (eksergonik), namun secara kinetika, prosesnya berjalan sangat lambat pada kondisi pH netral dan suhu fisiologis.
Stabilitas kinetik yang tinggi ini disebabkan oleh delokalisasi pasangan elektron bebas dari atom nitrogen ke atom karbon karbonil, yang memberikan karakter ikatan rangkap parsial pada ikatan peptida. Hal ini mengurangi sifat elektrofilik atom karbon karbonil dan meningkatkan energi aktivasi yang diperlukan untuk serangan nukleofilik oleh molekul air.
Dalam larutan berair dengan pH netral (sekitar 7.0), laju hidrolisis spontan ikatan peptida dalam taumatin dapat diabaikan untuk aplikasi praktis. Molekul air, sebagai nukleofil yang lemah, tidak cukup reaktif untuk menyerang pusat karbonil yang telah distabilkan oleh resonansi.
Stabilitas inilah yang memungkinkan protein seperti taumatin untuk mempertahankan integritas strukturalnya dalam sistem biologis maupun dalam formulasi produk makanan dan minuman selama masa simpan yang wajar, asalkan tidak ada faktor eksternal seperti panas ekstrem atau keberadaan enzim protease.
Kinetika hidrolisis dapat dipercepat secara signifikan dengan adanya katalis asam. Dalam suasana asam, ion hidronium (H3O+) berperan sebagai katalis dengan memprotonasi atom oksigen karbonil pada ikatan peptida.
Protonasi ini menarik rapatan elektron dari atom karbon karbonil, sehingga membuatnya menjadi jauh lebih elektrofilik dan rentan terhadap serangan nukleofilik oleh molekul air. Mekanisme ini secara drastis menurunkan energi aktivasi reaksi, sehingga laju pemutusan ikatan peptida meningkat pesat seiring dengan menurunnya pH larutan.
Langkah kunci pertama dalam mekanisme hidrolisis yang dikatalisis oleh asam adalah pembentukan kesetimbangan protonasi pada oksigen karbonil. Proses ini dapat direpresentasikan melalui persamaan kesetimbangan berikut, di mana R dan R’ melambangkan sisa rantai polipeptida yang terikat pada ikatan peptida yang sedang bereaksi:
R-CO-NH-R’ + H3O+ ↔ [R-C(OH)-NH-R’]+ + H2O
Spesies yang terprotonasi, [R-C(OH)-NH-R’]+, kemudian diserang oleh molekul air, yang diikuti oleh serangkaian transfer proton dan penataan ulang untuk akhirnya menghasilkan pemutusan ikatan C-N, meregenerasi katalis asam, dan menghasilkan dua fragmen peptida yang lebih kecil dengan gugus ujung karboksil dan amino yang baru.
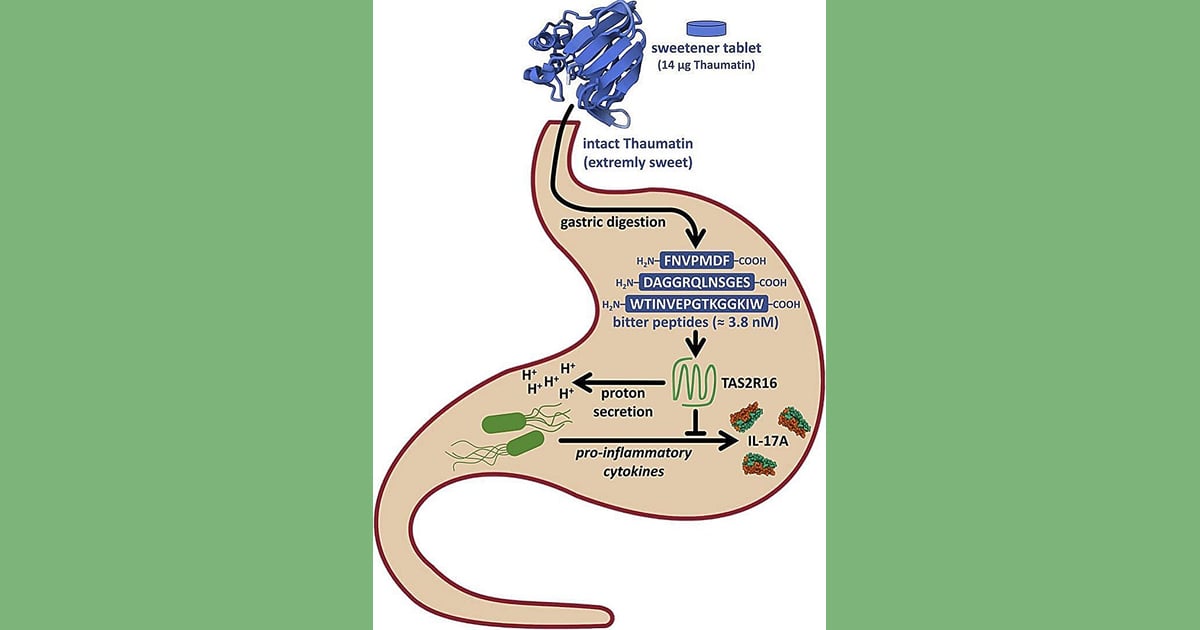
Pemahaman mengenai mekanisme hidrolisis ini tidak hanya penting dari sudut pandang stabilitas kimia, tetapi juga relevan secara fisiologis. Saat taumatin dikonsumsi, ia akan terpapar pada lingkungan yang sangat asam di lambung (pH 1.5-3.5), yang kaya akan asam klorida (HCl).
Kondisi ini akan memfasilitasi hidrolisisnya, yang selanjutnya disempurnakan oleh enzim protease seperti pepsin, menjadi peptida-peptida yang lebih kecil dan akhirnya asam amino individual yang dapat diserap oleh tubuh.
Pemodelan Dinamika Molekuler dari Sifat Lipofilik Taumatin
Pemodelan dinamika molekuler (Molecular Dynamics, MD) merupakan alat komputasi yang sangat kuat untuk menyelidiki perilaku protein pada skala atomistik. Melalui simulasi MD, para ilmuwan dapat memvisualisasikan bagaimana molekul taumatin bergerak, melipat, dan berinteraksi dengan lingkungannya, khususnya dengan molekul pelarut seperti air (H2O).
Meskipun taumatin secara keseluruhan sangat larut dalam air (bersifat hidrofilik), permukaannya tidaklah homogen. Simulasi MD memungkinkan identifikasi dan karakterisasi daerah-daerah spesifik pada permukaan protein yang menunjukkan sifat lipofilik atau hidrofobik, yang memainkan peran krusial dalam fungsi biologisnya.
Sifat lipofilik yang dimaksud pada taumatin tidak mengacu pada kelarutannya secara keseluruhan, melainkan pada keberadaan “tambalan” (patches) nonpolar pada permukaannya. Tambalan ini terbentuk dari akumulasi residu asam amino dengan rantai samping hidrofobik, seperti leusin, isoleusin, valin, dan fenilalanin. Simulasi MD dapat memetakan potensi elektrostatik permukaan molekul, dengan jelas menunjukkan wilayah-wilayah nonpolar ini.
Wilayah lipofilik ini sangat penting untuk interaksi protein-protein atau interaksi dengan molekul kecil lainnya, termasuk modulator rasa dan kemungkinan interaksinya dengan membran sel pada kuncup pengecap.
Simulasi MD secara gamblang menunjukkan bagaimana molekul air (H2O) mengatur diri di sekitar permukaan taumatin, membentuk apa yang disebut sebagai cangkang hidrasi (hydration shell). Di sekitar gugus-gugus polar, molekul air membentuk ikatan hidrogen yang terarah dan kuat, bergerak relatif lambat.
Sebaliknya, di sekitar tambalan lipofilik, molekul air tidak dapat membentuk ikatan hidrogen dengan permukaan protein. Untuk memaksimalkan ikatan hidrogen di antara mereka sendiri dan meminimalkan kontak yang tidak menguntungkan secara energetik dengan permukaan nonpolar, molekul-molekul air membentuk struktur seperti sangkar (clathrate-like) yang lebih teratur.
Fenomena ini, yang dikenal sebagai efek hidrofobik, merupakan salah satu pendorong utama pelipatan protein.
Dinamika molekuler juga mengungkapkan bahwa struktur taumatin tidaklah kaku, melainkan dinamis dan fleksibel, terus-menerus mengalami gerakan “pernapasan” (breathing motions) dalam skala waktu pikosekon hingga nanosekon. Pelipatan spasialnya merupakan keseimbangan yang rumit antara interaksi yang menguntungkan antara bagian-bagian hidrofilik dengan air (H2O) dan dorongan untuk menyembunyikan bagian-bagian lipofilik dari air.
Cara molekul menyelaraskan diri di sekitar molekul air secara spasial merupakan hasil dari minimalisasi energi bebas sistem secara keseluruhan, di mana penataan cangkang hidrasi memainkan peran yang sama pentingnya dengan interaksi internal dalam protein itu sendiri.
Aplikasi praktis dari pemodelan ini sangat luas. Dengan memahami distribusi spasial dari sifat lipofilik dan hidrofilik, para peneliti dapat merancang mutasi yang ditargetkan untuk mengubah kelarutan, stabilitas, atau afinitas pengikatan taumatin.
Sebagai contoh, simulasi MD dapat memprediksi bagaimana penggantian asam amino nonpolar di permukaan dengan yang polar dapat meningkatkan kelarutan atau mengubah cara taumatin berinteraksi dengan reseptor rasa manis. Pemodelan komputasi ini menjadi jembatan teoretis yang menghubungkan sekuens asam amino dengan struktur tiga dimensi dan, pada akhirnya, dengan fungsi makroskopisnya.
Analisis mendalam terhadap sifat fisikokimia taumatin—mulai dari interaksinya dengan kelembapan, ketahanannya terhadap panas ekstrem, hingga pemetaan permukaan molekulernya—memberikan fondasi yang kokoh untuk memahami mengapa protein ini berfungsi sebagai pemanis yang efektif dan stabil.
Karakteristik-karakteristik fundamental ini secara langsung menentukan perilaku taumatin dalam aplikasi pangan dan farmasi, serta membuka jalan bagi rekayasa protein yang bertujuan untuk lebih meningkatkan kinerjanya.
Isomerisme dan Stereokimia Molekul Taumatin
Taumatin, sebagai sebuah protein, secara inheren merupakan molekul kiral. Kiralitas makromolekul ini bukan berasal dari satu pusat kiral tunggal, melainkan merupakan konsekuensi kumulatif dari unit-unit penyusunnya, yaitu asam amiNo. Dari 20 asam amino proteinogenik standar, 19 di antaranya (semua kecuali glisin) bersifat kiral.
Pusat kiral pada asam-asam amino ini adalah atom karbon alfa (Cα), yang terikat pada empat gugus yang berbeda: gugus amino (-NH2), gugus karboksil (-COOH), atom hidrogen (-H), dan rantai samping (gugus R) yang unik untuk setiap jenis asam amiNo.
Secara alamiah, hampir semua protein pada organisme eukariotik, termasuk taumatin, secara eksklusif tersusun dari L-asam amiNo. Konfigurasi “L” (levo) merujuk pada tata ruang gugus-gugus di sekitar karbon alfa, yang merupakan bayangan cermin dari konfigurasi “D” (dextro).
Penggunaan L-asam amino secara konsisten oleh aparatus sintesis protein (ribosom) memastikan bahwa rantai polipeptida akan melipat menjadi konformasi tiga dimensi yang spesifik dan fungsional. Pilihan evolusioner untuk L-asam amino ini merupakan salah satu homokiralitas fundamental dalam biokimia.
Perbedaan stereokimia ini memiliki implikasi biologis yang sangat mendalam. Seandainya sebuah molekul “D-Taumatin” dapat disintesis secara artifisial, di mana setiap L-asam amino digantikan oleh enantiomer D-nya, molekul yang dihasilkan akan menjadi bayangan cermin sempurna (enantiomer) dari taumatin alami.
Meskipun memiliki komposisi dan urutan yang sama, D-Taumatin hampir pasti tidak akan memiliki rasa manis. Hal ini karena reseptor rasa manis pada lidah manusia (heterodimer T1R2/T1R3) sendiri merupakan protein kiral yang berevolusi untuk mengenali dan mengikat molekul dengan topografi permukaan yang sangat spesifik, yang hanya dimiliki oleh L-Taumatin.
Dalam nomenklatur yang lebih sistematis, yaitu sistem Cahn-Ingold-Prelog, konfigurasi absolut pada pusat kiral Cα juga dapat ditentukan sebagai (R) atau (S). Mayoritas L-asam amino memiliki konfigurasi (S). Namun, terdapat pengecualian penting yaitu L-sistein, yang memiliki konfigurasi (R).
Perbedaan ini bukan karena anomali stereokimia, melainkan karena aturan prioritas CIP, di mana gugus tiol (-CH2SH) pada sistein memiliki prioritas lebih tinggi daripada gugus karboksil (-COOH), mengubah penetapan konfigurasinya meskipun orientasi spasialnya serupa dengan L-asam amino lainnya. Kehadiran residu sistein (baik S maupun R-sistein dalam bentuk L) dalam taumatin menambah kompleksitas stereokimia molekul tersebut.
Oleh karena itu, kiralitas taumatin bukanlah sekadar fitur akademis, melainkan properti esensial yang mendasari seluruh fungsi biologisnya. Dari kiralitas L-asam amino sebagai blok penyusun, terbentuklah struktur sekunder heliks dan lembaran yang memiliki “arah putaran” spesifik, yang kemudian melipat menjadi struktur tersier globular dengan kantung pengikatan (binding pocket) dan permukaan interaksi yang unik secara stereospesifik.
Tanpa homokiralitas ini, taumatin tidak akan dapat melipat dengan benar dan tidak akan mampu memicu sinyal rasa manis.
Sifat Higroskopisitas: Kinetika Penyerapan Air oleh Bubuk Taumatin
Taumatin dalam bentuk bubuk atau kristal amorf menunjukkan sifat higroskopisitas yang signifikan, yang berarti ia memiliki afinitas kuat untuk menyerap molekul air (H2O) dari udara di sekitarnya. Fenomena ini berakar pada struktur molekuler protein itu sendiri, yang kaya akan gugus fungsional polar.
Rantai samping dari residu asam amino seperti serin, treonin, asam aspartat, dan lisin memiliki gugus hidroksil (-OH), karboksil (-COOH), dan amino (-NH2) yang mampu membentuk ikatan hidrogen dengan molekul air (H2O).
Interaksi elektrostatik ini merupakan gaya pendorong utama di balik penarikan dan pengikatan uap air dari atmosfer, menjadikan bubuk taumatin rentan terhadap perubahan fisik jika terpapar kelembapan.
Mekanisme penyerapan air oleh bubuk taumatin dapat dijelaskan secara kuantitatif melalui kurva isoterm sorpsi air. Kurva ini memetakan hubungan antara kadar air kesetimbangan dalam bubuk dengan aktivitas air (aw) lingkungan pada suhu konstan. Untuk taumatin, kurva ini umumnya mengikuti model Tipe II menurut klasifikasi Brunauer-Emmett-Teller (BET), yang khas untuk bahan amorf yang larut.
Pada tingkat kelembapan relatif rendah, molekul air (H2O) pertama-tama akan teradsorpsi sebagai lapisan monolayer pada situs-situs pengikatan paling aktif di permukaan protein. Seiring meningkatnya kelembapan, lapisan-lapisan air selanjutnya (multilayer) akan terbentuk di atas lapisan pertama.
Secara molekuler, gaya tarik utama yang bekerja merupakan ikatan hidrogen. Atom oksigen yang elektronegatif pada molekul air (H2O) bertindak sebagai akseptor ikatan hidrogen, sementara atom hidrogennya bertindak sebagai donor. Gugus-gugus polar pada permukaan taumatin menyediakan situs donor dan akseptor yang melimpah, menciptakan jaringan interaksi yang kuat.
Energi pengikatan lapisan air pertama jauh lebih tinggi dibandingkan lapisan berikutnya, karena lapisan ini berinteraksi langsung dengan permukaan protein. Lapisan air selanjutnya lebih menyerupai air curah (bulk water) dan terikat dengan energi yang lebih rendah, menjelaskan kenaikan tajam pada kurva isoterm pada aktivitas air (aw) yang tinggi.
Kinetika, atau laju penyerapan air, sangat dipengaruhi oleh faktor fisik bubuk taumatin. Laju difusi molekul air (H2O) ke dalam matriks bubuk bergantung pada gradien tekanan uap antara udara dan permukaan partikel, serta luas permukaan spesifik bubuk tersebut.
Partikel yang lebih kecil dengan rasio luas permukaan terhadap volume yang lebih besar akan menyerap kelembapan dan mencapai kesetimbangan lebih cepat. Proses ini juga dipengaruhi oleh porositas dan struktur amorf bubuk, yang menyediakan jalur bagi molekul air untuk menembus lebih dalam ke struktur internal partikel, tidak hanya di permukaan.
Implikasi praktis dari higroskopisitas ini sangat penting dalam industri makanan dan farmasi. Penyerapan air yang berlebihan dapat menyebabkan masalah serius seperti penggumpalan (caking), yang mengurangi daya alir (flowability) dan mempersulit penanganan serta dosis yang akurat.
Lebih lanjut, peningkatan aktivitas air (aw) di atas ambang batas kritis (umumnya >0.6) dapat memicu pertumbuhan mikroba dan mempercepat reaksi degradasi kimia, yang pada akhirnya memperpendek umur simpan produk. Oleh karena itu, penyimpanan taumatin memerlukan kemasan kedap udara dengan penghalang kelembapan yang efektif untuk menjaga kualitas dan stabilitasnya.
Termodinamika Perubahan Fasa Taumatin selama Pemrosesan Suhu Ultra Tinggi (UHT)
| Aspek Fenomena | Deskripsi & Mekanisme | Kondisi/Faktor Kritis | Konsekuensi & Implikasi |
|---|---|---|---|
| Stabilitas Termal Taumatin | Menunjukkan stabilitas termal yang luar biasa, tidak lazim bagi kebanyakan protein. Mampu mempertahankan struktur dan fungsinya. | Pemrosesan Suhu Ultra Tinggi (UHT): suhu ~135°C, durasi beberapa detik. | Cocok sebagai pemanis untuk produk yang memerlukan pasteurisasi atau sterilisasi suhu tinggi. |
| Kinetika Proses Pemanasan UHT | Laju transfer energi yang sangat cepat meningkatkan energi kinetik molekul secara drastis, menyebabkan getaran intens pada ikatan peptida dan rantai samping. | Laju pemanasan dan pendinginan yang sangat cepat pada UHT. | Menginduksi keadaan terdenaturasi parsial atau temporer, di mana beberapa bagian struktur tersiernya mulai terbuka atau “meleleh”. |
| Pencegahan Denaturasi Ireversibel | Denaturasi permanen melibatkan pembukaan struktur dan agregasi. Proses agregasi memerlukan waktu yang lebih lama. | Durasi pemaparan suhu tinggi yang sangat singkat pada UHT, diikuti pendinginan cepat. | Rantai polipeptida tidak memiliki cukup waktu untuk saling menemukan dan membentuk agregat yang tidak larut; cenderung melipat kembali (refolding) ke konformasi aslinya. |
| Peran Jembatan Disulfida | Struktur unik taumatin diperkuat oleh delapan jembatan disulfida (-S-S-) yang sangat kuat, bertindak sebagai “penjepit” molekuler. | Ikatan kovalen yang stabil dan resisten terhadap pemutusan termal singkat. | Meningkatkan penghalang energi aktivasi untuk denaturasi total, memastikan setiap pembukaan struktur bersifat lokal dan dapat pulih (reversibel) saat suhu diturunkan. |
| Potensi Reaksi Samping (Maillard & Karamelisasi) | Reaksi Maillard terjadi antara gugus amino dari asam amino dengan gula pereduksi. Karamelisasi adalah dekomposisi termal gula. | Waktu pemrosesan UHT yang hanya beberapa detik. | Tidak cukup waktu bagi reaksi-reaksi ini berlangsung hingga tingkat yang signifikan, meminimalkan pembentukan senyawa warna atau perubahan rasa yang tidak diinginkan. |
| Prinsip Termodinamika Stabilitas | Konformasi asli (native state) dari taumatin berada pada tingkat energi bebas Gibbs yang paling rendah, menjadikannya keadaan yang paling stabil secara termodinamika. | Proses UHT secara singkat “mendorong” molekul ke keadaan terdenaturasi dengan energi yang lebih tinggi. | Mampu kembali ke keadaan energi rendah aslinya saat pendinginan karena tidak ada perubahan permanen seperti agregasi atau pemutusan ikatan kovalen. |
Taumatin menunjukkan stabilitas termal yang luar biasa, suatu sifat yang tidak lazim bagi kebanyakan protein. Selama pemrosesan Suhu Ultra Tinggi (UHT), di mana produk dipanaskan dengan cepat hingga suhu sekitar 135°C selama beberapa detik, taumatin mampu mempertahankan struktur dan fungsinya. Kunci dari ketahanan ini terletak pada kinetika proses pemanasan.
Laju transfer energi yang sangat cepat meningkatkan energi kinetik molekul secara drastis, menyebabkan getaran intens pada ikatan-ikatan peptida dan rantai samping. Hal ini menginduksi keadaan terdenaturasi parsial atau temporer, di mana beberapa bagian struktur tersiernya mulai terbuka atau “meleleh”.
Meskipun suhu tinggi menyediakan energi yang cukup untuk memutus interaksi non-kovalen seperti ikatan hidrogen dan interaksi hidrofobik yang menstabilkan lipatan protein, durasi pemaparan yang sangat singkat pada UHT mencegah terjadinya perubahan ireversibel. Denaturasi permanen umumnya melibatkan dua langkah: pembukaan (unfolding) struktur asli, diikuti oleh agregasi dari rantai-rantai polipeptida yang terbuka tersebut. Proses agregasi ini memerlukan waktu.
Karena pendinginan setelah UHT juga berlangsung cepat, rantai polipeptida tidak memiliki cukup waktu untuk saling menemukan dan membentuk agregat yang tidak larut. Sebaliknya, mereka cenderung untuk melipat kembali (refolding) ke konformasi aslinya yang stabil secara termodinamika.
Struktur unik taumatin sendiri memberikan kontribusi besar terhadap stabilitas termalnya. Molekul ini diperkuat oleh delapan jembatan disulfida (-S-S-) yang sangat kuat. Ikatan kovalen ini bertindak sebagai “penjepit” molekuler yang secara fisik menahan bagian-bagian berbeda dari rantai polipeptida tetap berdekatan, bahkan ketika energi kinetik yang tinggi mencoba membukanya.
Jembatan disulfida ini secara signifikan meningkatkan penghalang energi aktivasi untuk denaturasi total, memastikan bahwa setiap pembukaan struktur yang terjadi bersifat lokal dan dapat pulih (reversibel) begitu suhu diturunkan.
Selain denaturasi, suhu tinggi juga berpotensi menyebabkan reaksi Maillard atau karamelisasi. Reaksi Maillard terjadi antara gugus amino dari asam amino dengan gula pereduksi, sementara karamelisasi merupakan dekomposisi termal gula. Meskipun taumatin merupakan protein, asam aminonya dapat berpartisipasi dalam reaksi Maillard.
Namun, sama seperti pada kasus denaturasi, waktu pemrosesan UHT yang hanya beberapa detik tidak cukup untuk memungkinkan reaksi-reaksi ini berlangsung hingga tingkat yang signifikan. Akibatnya, pembentukan senyawa warna (melanoidin) atau perubahan rasa yang tidak diinginkan dapat diminimalkan, menjaga kejernihan dan profil rasa asli dari produk.
Dari perspektif termodinamika, konformasi asli (native state) dari taumatin berada pada tingkat energi bebas Gibbs yang paling rendah, menjadikannya keadaan yang paling stabil. Proses UHT secara singkat “mendorong” molekul ke keadaan terdenaturasi dengan energi yang lebih tinggi.
Namun, karena tidak ada perubahan permanen seperti agregasi atau pemutusan ikatan kovalen (disulfida), molekul dapat dengan mudah kembali ke keadaan energi rendah aslinya saat pendinginan.
Kemampuan untuk pulih dari guncangan termal singkat inilah yang menjadikan taumatin pemanis yang sangat cocok untuk produk-produk yang memerlukan pasteurisasi atau sterilisasi suhu tinggi.
Identitas Molekuler dan Klasifikasi Kimia Taumatin
Ditinjau dari perspektif kimia, taumatin merupakan sebuah makromolekul biologis yang kompleks. Senyawa ini tidak memiliki nama IUPAC sistematis yang ringkas layaknya molekul organik kecil, karena strukturnya yang berupa polipeptida. Secara ilmiah, taumatin diidentifikasi melalui serangkaian parameter spesifik yang membedakannya dari protein lain.
Parameter ini mencakup nomor registrasi dalam Chemical Abstracts Service (CAS), massa molekul relatif, serta rumus molekul yang merefleksikan komposisi atomiknya yang sangat besar. Identitas ini krusial untuk standardisasi dalam aplikasi industri, penelitian biokimia, dan regulasi keamanan pangan, memastikan bahwa substansi yang digunakan konsisten secara struktural dan fungsional di berbagai laboratorium dan produk komersial.
| Parameter Identitas | Nilai atau Deskripsi |
|---|---|
| Nama Umum | Taumatin (Thaumatin) |
| Nomor CAS | 53850-34-3 |
| Rumus Molekul | C969H1539N259O295S9 (untuk Taumatin I) |
| Massa Molar | ~22,209 Da (Dalton) atau g/mol |
| Tipe Senyawa | Protein Polipeptida |
Klasifikasi kimia taumatin dapat diuraikan lebih lanjut berdasarkan beberapa aspek fundamental yang menentukan sifat fisikokimianya:
- Berdasarkan Gugus Fungsi: Sebagai sebuah protein, struktur taumatin didominasi oleh ikatan peptida (-CONH-) yang menghubungkan 207 residu asam amino. Rantai polipeptida ini juga mengandung gugus fungsional terminal, yaitu gugus amino (-NH2) pada N-terminus dan gugus karboksil (-COOH) pada C-terminus. Keunikan strukturnya diperkuat oleh adanya delapan jembatan disulfida (-S-S-), yang terbentuk dari oksidasi gugus tiol (-SH) pada residu sistein. Jembatan ini sangat vital dalam menjaga konformasi tiga dimensi protein yang stabil.
- Berdasarkan Tingkat Polaritas: Taumatin merupakan molekul yang bersifat polar. Polaritas ini timbul dari banyaknya gugus fungsional polar seperti amida, karboksil, dan amino, serta rantai samping hidrofilik dari beberapa asam amino penyusunnya. Sifat polar ini menjelaskan kelarutan taumatin yang sangat baik dalam air (H2O), sebuah karakteristik penting untuk aplikasinya sebagai pemanis dalam produk minuman dan makanan berbasis air.
- Berdasarkan Kategori Organik/Anorganik: Secara tegas, taumatin diklasifikasikan sebagai makromolekul organik. Strukturnya dibangun di atas kerangka karbon yang kompleks, dengan atom-atom lain seperti hidrogen (H), nitrogen (N), oksigen (O), dan sulfur (S) terikat secara kovalen. Senyawa ini merupakan produk sintesis biologis dalam organisme hidup, yang menjadi ciri khas dari senyawa organik.
Dalam hierarki klasifikasi biokimia, taumatin menempati posisi spesifik dalam superfamili protein yang dikenal sebagai Pathogenesis-Related (PR) proteins, lebih tepatnya dalam famili PR-5. Protein dalam kelompok ini, yang juga disebut sebagai thaumatin-like proteins (TLPs), memiliki kesamaan sekuens dan lipatan tiga dimensi yang khas.
Meskipun fungsi utama taumatin yang dieksploitasi secara komersial adalah sebagai pemanis, peran biologis alaminya dalam tanaman terkait dengan pertahanan terhadap patogen, menunjukkan dualisme fungsional yang menarik dari struktur molekul yang sama.
Pertanyaan Umum (FAQ)
Bagaimana Taumatin diklasifikasikan secara kimiawi dan apa sumbernya?
Mengapa taumatin dianggap non-kariogenik atau tidak menyebabkan kerusakan gigi?
Faktor apa yang membuat taumatin stabil pada suhu tinggi, seperti dalam proses UHT?
Apa dampak sifat higroskopisitas pada bubuk taumatin dan bagaimana penanganannya?
Mengapa stereokimia (kiralitas) taumatin krusial bagi kemampuannya memberikan rasa manis?
Kesimpulan
Taumatin adalah pemanis alami berintensitas tinggi yang unik, diekstraksi dari buah katemfe, dan secara kimiawi diklasifikasikan sebagai protein. Struktur makromolekulnya yang kompleks, ditandai oleh rantai polipeptida dengan 207 residu asam amino, delapan jembatan disulfida, dan kiralitas L-asam amino, merupakan kunci bagi potensi kemanisannya yang mencapai 2.000 hingga 3.000 kali sukrosa.
Properti fisikokimia fundamental ini, termasuk stabilitas termal yang luar biasa pada pemrosesan UHT, kemampuan hidrolisis dalam lingkungan asam lambung, dan sifat non-kariogenik terhadap gigi, menjadikannya aditif pangan yang sangat menarik.
Meskipun memiliki banyak keunggulan, taumatin juga menunjukkan higroskopisitas signifikan yang memerlukan penanganan dan penyimpanan yang cermat untuk mencegah penggumpalan dan degradasi produk. Pemahaman mendalam tentang identitas molekuler, stereokimia, mekanisme hidrolisis, serta interaksi dengan lingkungan sekitarnya, yang dapat diselidiki melalui pemodelan dinamika molekuler, sangat vital untuk mengoptimalkan aplikasi taumatin dalam industri makanan dan farmasi.
Karakteristik-karakteristik ini secara kolektif memastikan taumatin sebagai pemanis yang efektif dan stabil, dengan potensi besar dalam berbagai formulasi produk.
Referensi
- Badan Pengawas Obat dan Makanan (BPOM)
- Organisasi Kesehatan Dunia (WHO)
- Food and Drug Administration (FDA)
Related posts