
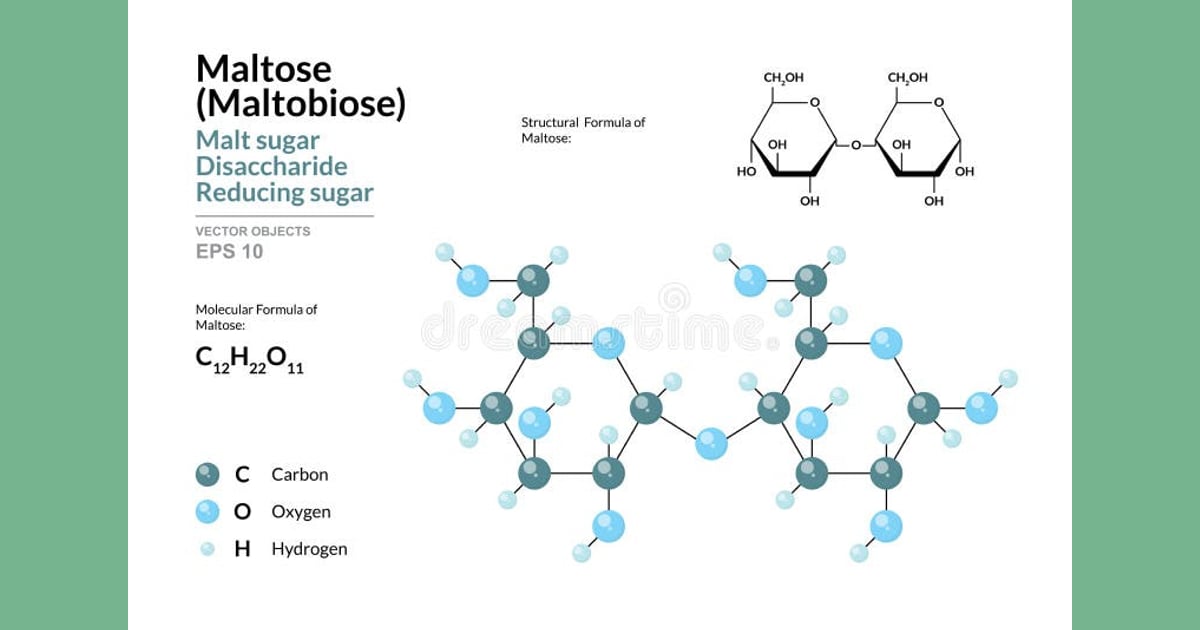
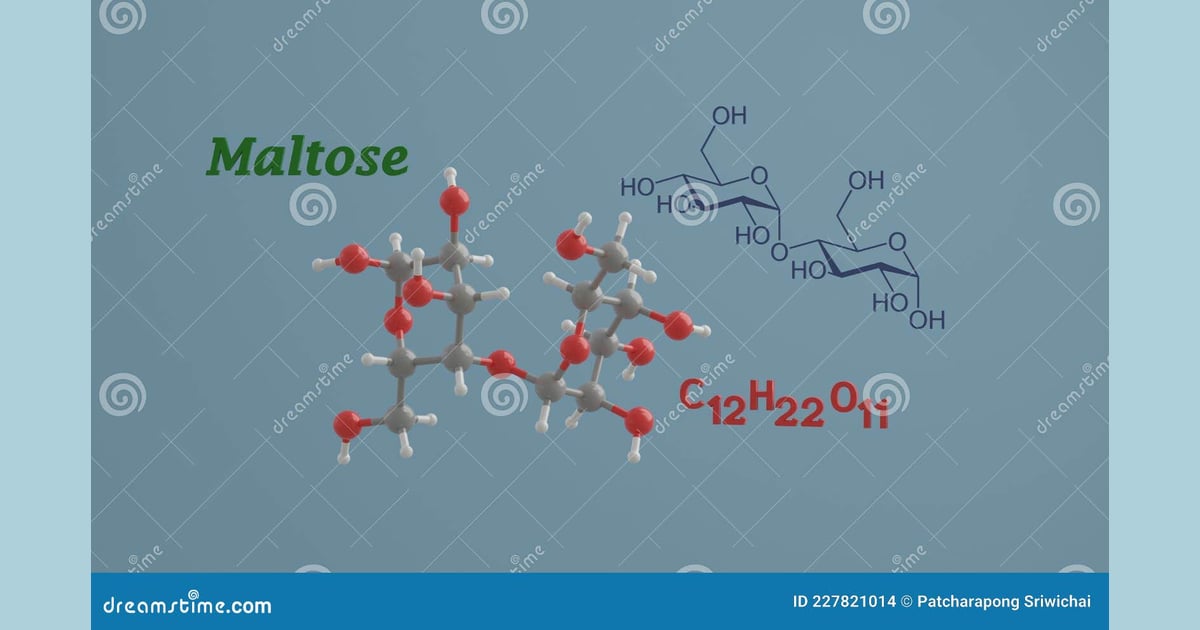
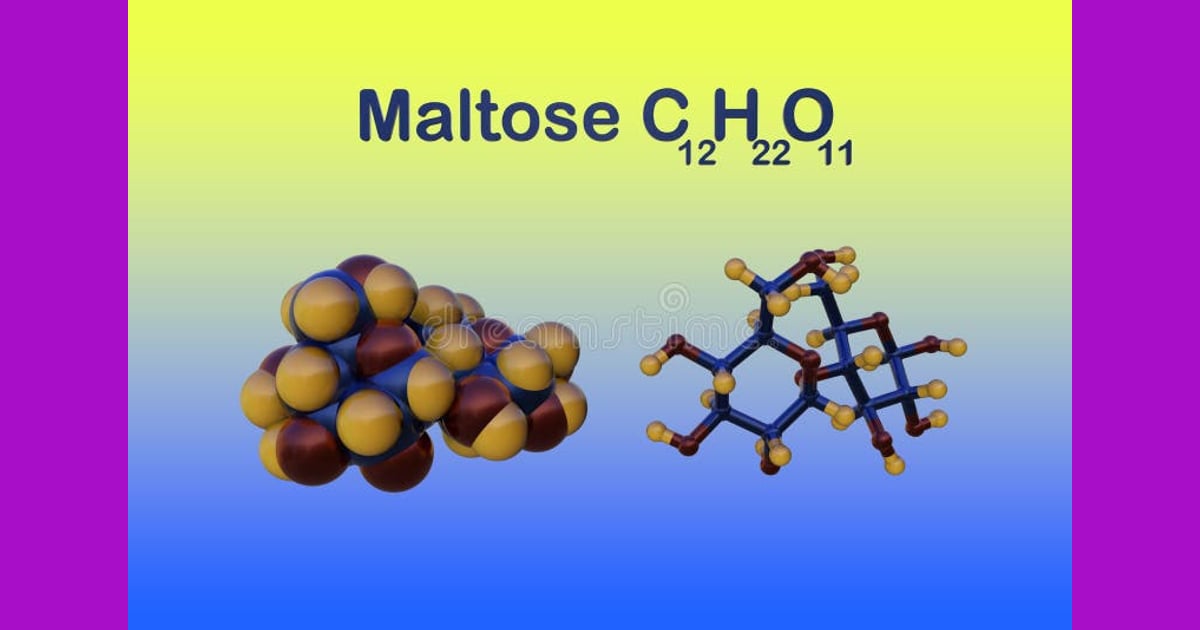
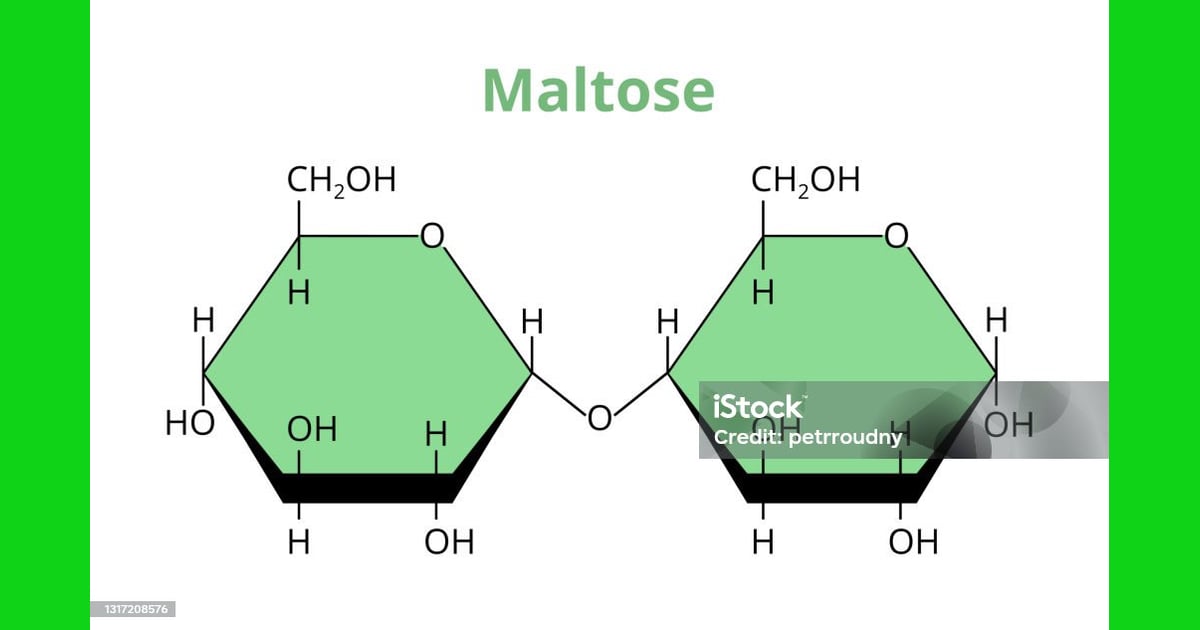
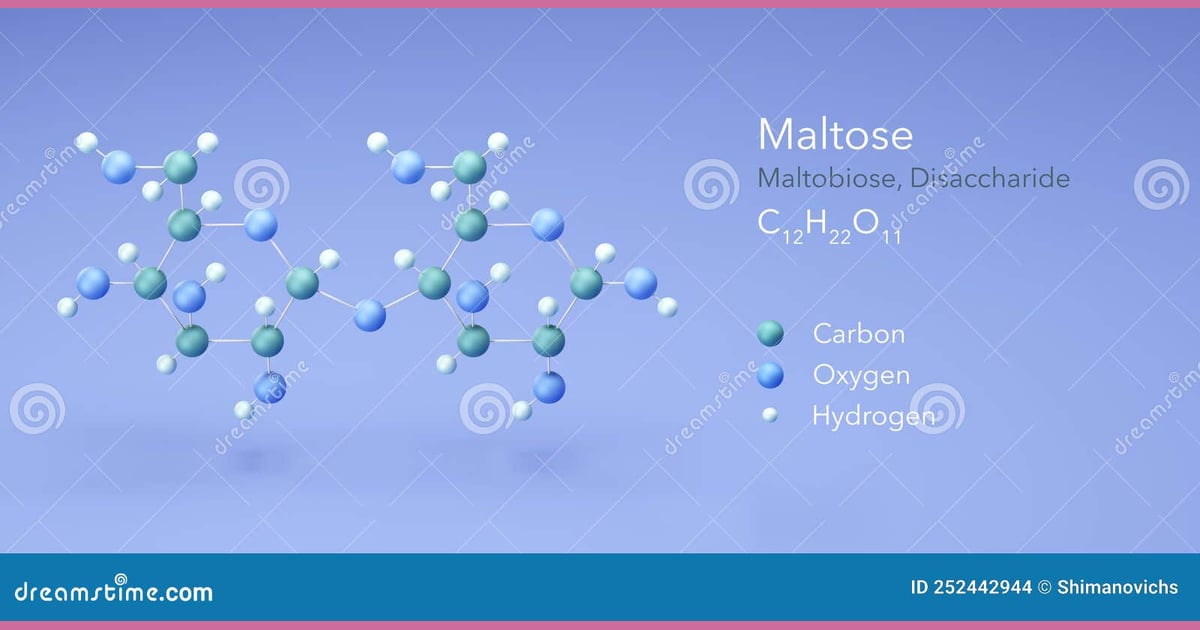
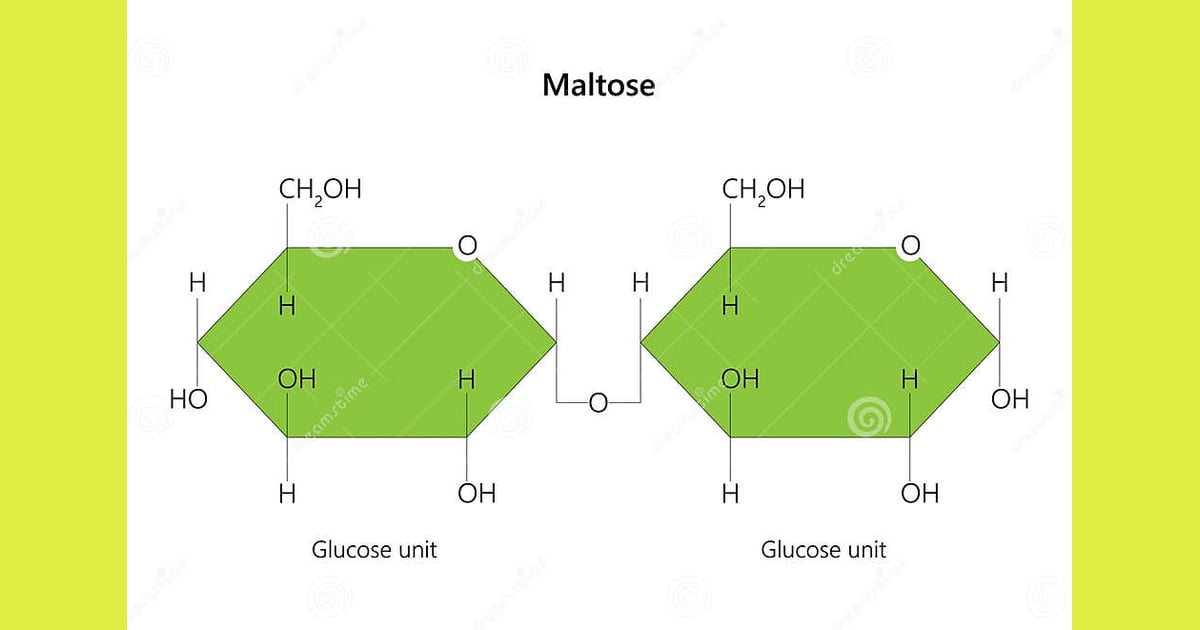
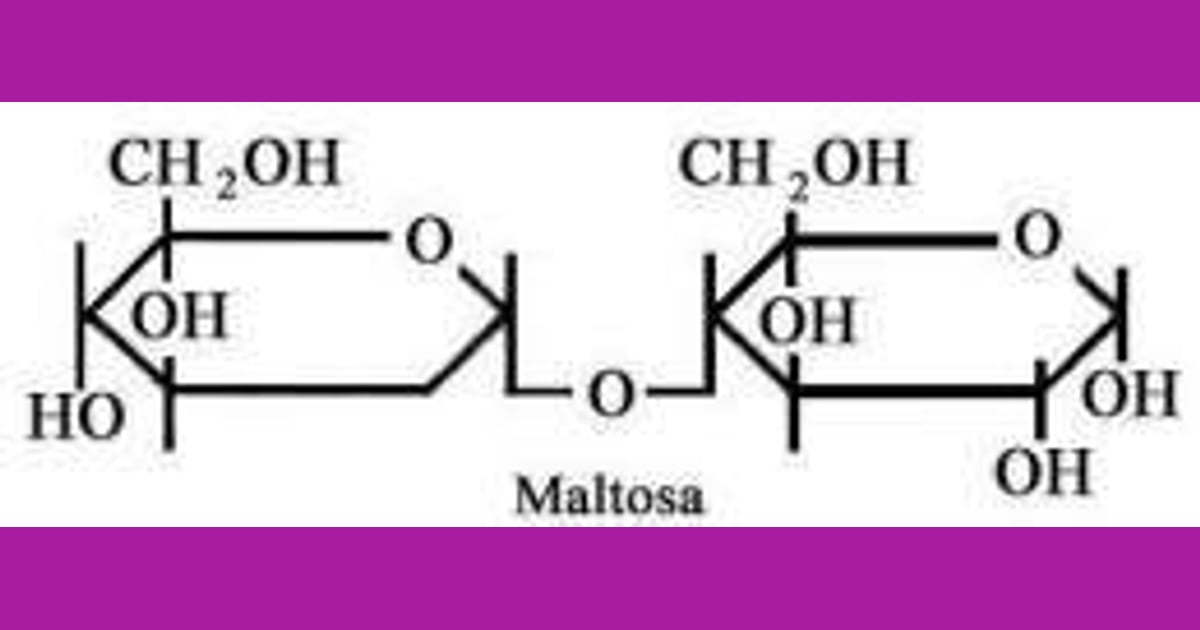
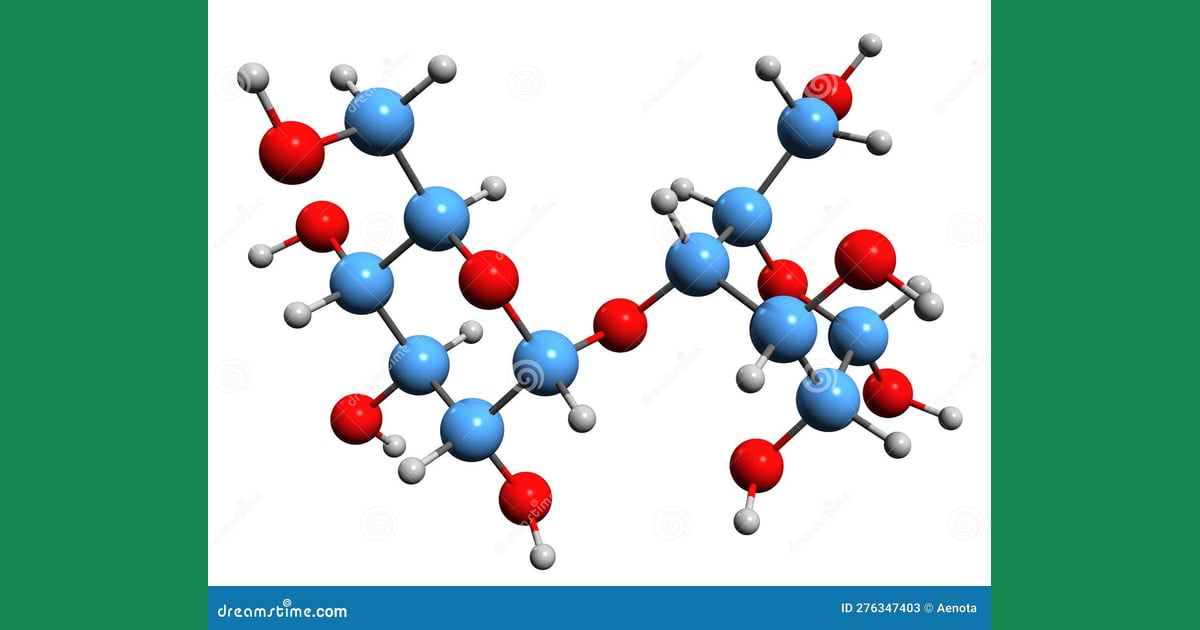
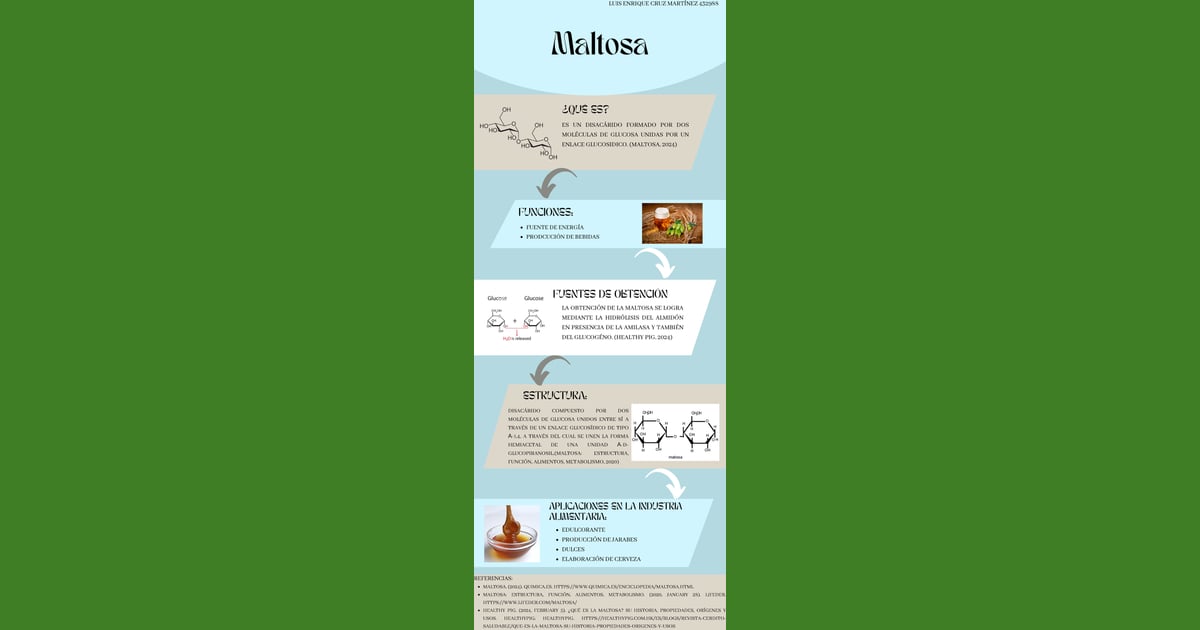
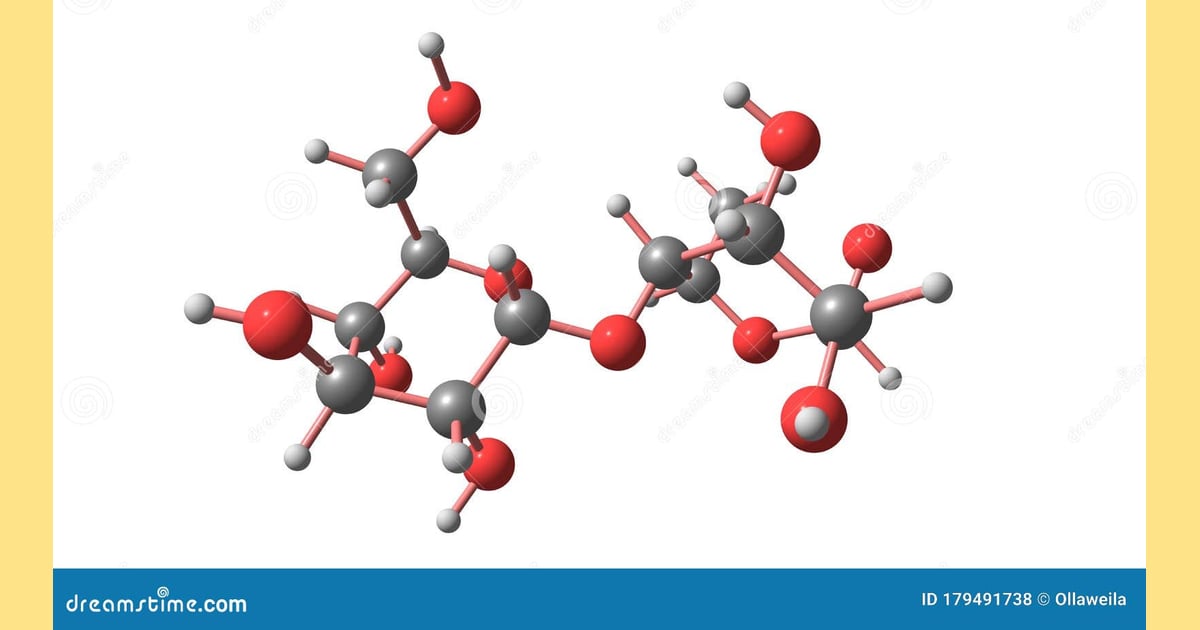
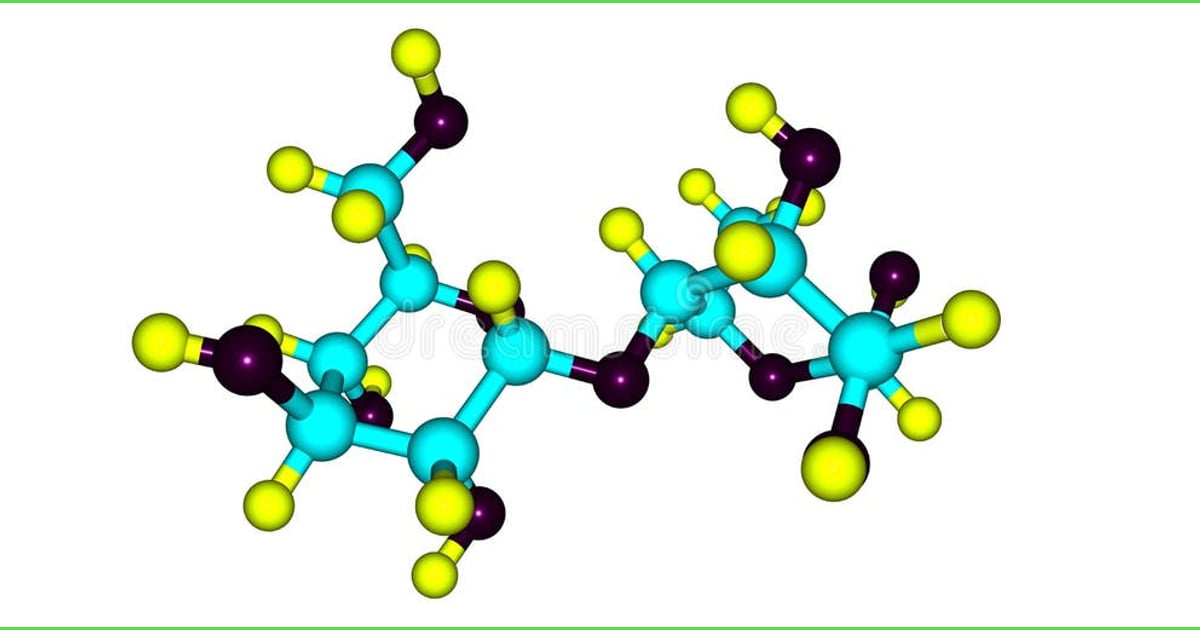
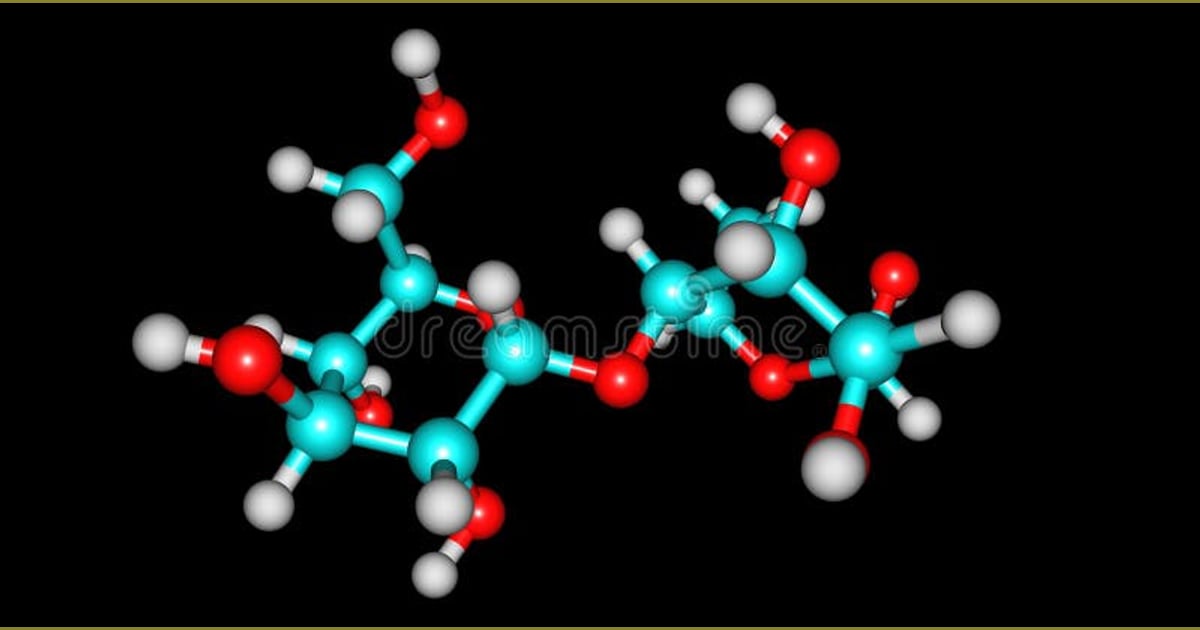
Maltosa, dengan rumus kimia C12H22O11, merupakan disakarida yang memegang peranan fundamental dalam biokimia dan teknologi pangan. Senyawa ini tersusun dari dua unit α-glukosa yang saling terhubung melalui ikatan glikosidik α(1→4). Ikatan ini terbentuk antara karbon anomerik (karbon nomor 1) dari satu molekul glukosa dengan gugus hidroksil pada karbon nomor 4 dari molekul glukosa kedua. Keberadaan ikatan spesifik inilah yang membedakan maltosa dari disakarida isomernya, seperti selobiosa (ikatan β(1→4)) atau sukrosa. Secara termodinamika, pembentukan ikatan glikosidik ini merupakan reaksi dehidrasi, di mana satu molekul air (H2O) dilepaskan untuk setiap pembentukan satu molekul maltosa dari dua molekul glukosa.
Struktur molekul maltosa (C12H22O11) bersifat dinamis di dalam larutan. Salah satu dari dua unit glukosa penyusunnya memiliki gugus hemiasetal yang bebas dan tidak terlibat dalam ikatan glikosidik. Gugus hemiasetal ini dapat terbuka membentuk gugus aldehida bebas, yang kemudian dapat menutup kembali untuk membentuk anomer α atau β. Fenomena kesetimbangan antara bentuk siklik dan bentuk rantai terbuka ini dikenal sebagai mutarotasi. Kehadiran gugus aldehida potensial inilah yang mengklasifikasikan maltosa sebagai gula pereduksi, yang mampu mereduksi ion-ion logam seperti Cu2+ dalam pereaksi Benedict atau Fehling, sebuah sifat kimia yang krusial untuk analisis kualitatif dan kuantitatifnya.
Ditinjau dari aspek hibridisasi orbital atom, atom-atom karbon yang menyusun cincin piranosa pada kedua unit glukosa dalam maltosa sebagian besar mengalami hibridisasi sp3. Hal ini dikarenakan setiap atom karbon tersebut membentuk empat ikatan tunggal (sigma) dengan atom karbon, oksigen, atau hidrogen di sekitarnya, menghasilkan geometri tetrahedral. Pengecualian terjadi pada kondisi transien saat cincin hemiasetal terbuka, di mana karbon karbonil dari gugus aldehida akan memiliki hibridisasi sp2 dengan geometri trigonal planar. Atom oksigen yang membentuk jembatan pada ikatan glikosidik α(1→4) juga mengalami hibridisasi sp3, dengan dua pasang elektron bebas yang menempati dua orbital hibridanya.
Seluruh ikatan yang membentuk molekul maltosa (C12H22O11) merupakan ikatan kovalen. Ikatan C-C, C-H, dan C-O yang membangun kerangka molekul adalah ikatan kovalen, dengan tingkat kepolaran yang bervariasi akibat perbedaan elektronegativitas antara atom-atom yang terlibat. Ikatan glikosidik α(1→4) itu sendiri adalah ikatan kovalen polar yang kuat, yang memerlukan katalis (asam atau enzim) untuk dapat dihidrolisis secara efisien. Tidak terdapat ikatan ionik atau ikatan koordinasi intramolekuler dalam struktur maltosa. Sifat fisika dan kimianya, seperti kelarutan tinggi dalam air dan titik lelehnya, sangat dipengaruhi oleh interaksi antarmolekul, terutama ikatan hidrogen.
Interaksi antarmolekul yang dominan pada maltosa adalah ikatan hidrogen. Setiap molekul maltosa (C12H22O11) memiliki banyak gugus hidroksil (-OH) yang berfungsi sebagai donor sekaligus akseptor ikatan hidrogen. Kemampuan ini memungkinkan maltosa untuk membentuk jaringan ikatan hidrogen yang ekstensif dengan molekul air (H2O), yang menjelaskan kelarutannya yang sangat baik dalam pelarut polar tersebut. Ikatan hidrogen ini juga bertanggung jawab atas sifat higroskopisnya, yaitu kemampuannya untuk menarik dan menahan molekul air dari lingkungan sekitar, menjadikannya humektan yang efektif dalam aplikasi pangan.
Pemahaman mendalam mengenai struktur dan sifat kimiawi maltosa ini tidak muncul secara instan, melainkan melalui serangkaian penemuan dan analisis yang berevolusi seiring waktu. Sejarahnya yang panjang berkelindan erat dengan perkembangan bioteknologi dan industri pangan global.
Sejarah Penemuan dan Penggunaan Maltosa dalam Pangan
Sejarah pemanfaatan maltosa secara tidak langsung telah dimulai sejak peradaban kuno, ribuan tahun sebelum senyawa ini diidentifikasi secara kimiawi. Praktik pembuatan bir oleh bangsa Mesopotamia dan Mesir kuno, yang melibatkan proses perendaman dan pengecambahan biji-bijian sereal seperti jelai (barley), secara inheren menghasilkan maltosa. Proses yang dikenal sebagai “malting” ini mengaktifkan enzim amilase alami dalam biji-bijian, yang menghidrolisis pati menjadi maltosa (C12H22O11), gula yang kemudian akan difermentasi oleh ragi untuk menghasilkan alkohol dan karbon dioksida (CO2).
Identifikasi maltosa sebagai entitas kimia yang berbeda baru terjadi pada pertengahan abad ke-19. Pada tahun 1847, kimiawan Prancis Augustin-Pierre Dubrunfaut menjadi orang pertama yang mengisolasi dan mengenali maltosa. Ia berhasil mengekstraksi gula ini dari larutan hasil dekomposisi pati oleh ekstrak malt (jelai yang dikecambahkan). Dubrunfaut menamai senyawa baru ini “maltose”, yang berasal dari kata “malt” dan sufiks “-ose” yang umum digunakan untuk gula. Penemuan ini menjadi tonggak penting yang memisahkan maltosa dari gula lain yang telah dikenal seperti sukrosa dan glukosa.
Setelah penemuannya, tantangan berikutnya adalah elusidasi struktur kimianya. Pada akhir abad ke-19 dan awal abad ke-20, karya monumental dari Emil Fischer mengenai kimia karbohidrat memberikan landasan teoretis yang fundamental. Ia membuktikan bahwa maltosa tersusun dari dua unit glukosa. Namun, penentuan konfigurasi ikatan yang presisi, yaitu sebagai ikatan glikosidik α(1→4), merupakan hasil kerja keras dari beberapa ilmuwan, termasuk Sir Walter Norman Haworth pada tahun 1920-an, yang karyanya tentang struktur karbohidrat memberinya Hadiah Nobel Kimia.
Revolusi dalam penggunaan maltosa terjadi pada abad ke-20 dengan kemajuan teknologi enzim. Pengembangan metode produksi skala industri untuk enzim seperti α-amilase dan β-amilase memungkinkan konversi pati dari berbagai sumber (jagung, kentang, tapioka) menjadi sirup dengan kandungan maltosa yang tinggi. Proses ini jauh lebih efisien dan terkontrol dibandingkan proses malting tradisional. Sirup jagung tinggi maltosa (high-maltose corn syrup) menjadi komoditas penting dalam industri pangan global, menawarkan fungsionalitas yang berbeda dari sirup glukosa atau fruktosa.
Dalam teknologi pangan modern, maltosa (C12H22O11) dihargai bukan hanya sebagai pemanis. Tingkat kemanisannya yang lebih rendah dibandingkan sukrosa membuatnya ideal untuk produk yang tidak ingin terlalu manis. Sifatnya yang tahan terhadap kristalisasi sangat berguna dalam pembuatan permen keras dan kembang gula. Dalam industri roti, maltosa merupakan substrat yang mudah difermentasi oleh ragi, menghasilkan pengembangan adonan yang baik, serta berkontribusi pada reaksi Maillard yang menciptakan warna cokelat keemasan dan aroma khas pada kulit roti.
Kini, pemahaman mengenai maltosa telah berkembang hingga ke aspek nutrisi dan kesehatan. Sebagai disakarida yang terdiri dari dua molekul glukosa, maltosa memiliki indeks glikemik yang tinggi, artinya cepat dihidrolisis menjadi glukosa dan diserap ke dalam aliran darah. Hal ini membuatnya bermanfaat dalam produk nutrisi olahraga untuk pemulihan energi yang cepat. Di sisi lain, kontrol penggunaannya juga menjadi perhatian dalam formulasi produk untuk manajemen berat badan atau diabetes, mendorong inovasi dalam penciptaan pemanis fungsional lainnya.
Seiring dengan meluasnya penggunaan maltosa dalam produk pangan komersial yang dikemas, perhatian para ilmuwan juga tertuju pada interaksi kompleks antara bahan pangan ini dengan materi kemasannya, sebuah area studi yang krusial untuk keamanan pangan.
Interaksi dan Migrasi Kimiawi Maltosa dari Kemasan Pangan
Dalam konteks keamanan pangan, diskusi mengenai maltosa dan kemasan tidak berfokus pada migrasi maltosa itu sendiri, melainkan pada bagaimana matriks pangan yang mengandung maltosa (C12H22O11) dapat memengaruhi migrasi senyawa kimia dari bahan kemasan ke dalam produk. Migrasi kimiawi merupakan fenomena transfer massa yang didorong oleh gradien konsentrasi, di mana molekul berbobot molekul rendah dari kemasan berpindah ke dalam makanan. Proses ini dipengaruhi secara signifikan oleh sifat fisiko-kimia makanan, termasuk keberadaan gula seperti maltosa.
Pada kemasan plastik seperti polietilena tereftalat (PET) atau polipropilena (PP), senyawa yang berpotensi bermigrasi meliputi monomer sisa, oligomer, aditif seperti plasticizer (misalnya ftalat), antioksidan, dan slip agent. Suhu tinggi, seperti pada proses pengisian panas (hot-filling) minuman atau saus yang mengandung sirup maltosa, secara eksponensial mempercepat laju difusi senyawa-senyawa ini dari polimer ke makanan. Sifat polar dari larutan maltosa dapat secara selektif memengaruhi partisi migran; senyawa polar dari kemasan mungkin memiliki afinitas yang lebih tinggi terhadap fase air yang kaya gula dibandingkan dengan senyawa non-polar.
Untuk kemasan kaleng logam, lapisan pelindung internal (coating) berbahan dasar polimer, seperti resin epoksi, digunakan untuk mencegah kontak langsung antara makanan dan logam. Lapisan ini dapat melepaskan senyawa seperti bisphenol A (BPA) atau turunannya (misalnya BADGE). Keasaman (pH) produk pangan merupakan faktor kunci yang dapat mempercepat degradasi lapisan ini dan meningkatkan migrasi. Meskipun maltosa bersifat netral, produk fermentasinya (misalnya asam laktat dalam beberapa aplikasi) atau penambahan asam lain (seperti asam sitrat) dalam formulasi dapat menciptakan lingkungan agresif yang mendorong pelepasan senyawa dari coating serta ion logam seperti timah (Sn2+) atau besi (Fe2+) dari kaleng jika lapisan pelindung tergores atau tidak sempurna.
Kemasan berbasis kertas dan karton, terutama yang terbuat dari bahan daur ulang, dapat menjadi sumber migrasi kontaminan seperti minyak mineral, yang terdiri dari MOSH (Mineral Oil Saturated Hydrocarbons) dan MOAH (Mineral Oil Aromatic Hydrocarbons). Kontaminan ini berasal dari tinta cetak dan perekat pada kertas bekas. Untuk produk pangan berkadar air rendah namun mengandung maltosa, seperti biskuit atau sereal, migrasi dapat terjadi melalui fase uap. Kehadiran maltosa sebagai humektan dapat memengaruhi aktivitas air (aw) produk, yang secara tidak langsung dapat memodulasi laju transfer beberapa jenis migran.
Secara keseluruhan, laju dan tingkat migrasi kimiawi dari kemasan ke dalam makanan yang mengandung maltosa diatur oleh hukum difusi Fick. Faktor-faktor penentunya meliputi suhu penyimpanan, durasi kontak, luas permukaan kontak, serta koefisien partisi senyawa migran antara kemasan dan matriks makanan. Matriks makanan yang kompleks, di mana maltosa (C12H22O11) memengaruhi viskositas, polaritas, dan aktivitas air, berperan sebagai “simulan pangan” yang unik yang menentukan nasib akhir dari senyawa-senyawa yang berpotensi membahayakan kesehatan tersebut.
Stabilitas Emulsi dan Kinerja Koloid Maltosa dalam Sistem Pangan Emulsi
Dalam sistem pangan emulsi seperti mayones, margarin, atau saus salad, stabilitas merupakan parameter kualitas yang paling krusial. Emulsi adalah sistem dispersi koloid dari dua cairan yang tidak saling campur, umumnya minyak dan air. Maltosa (C12H22O11), meskipun bukan merupakan surfaktan atau pengemulsi klasik, memainkan peran pendukung yang sangat penting dalam menstabilkan sistem ini. Perannya tidak terjadi pada antarmuka minyak-air, melainkan di dalam fase kontinu, yaitu fase air.
Konsep Keseimbangan Hidrofilik-Lipofilik (Hydrophilic-Lipophilic Balance/HLB) digunakan untuk mengkarakterisasi pengemulsi. Pengemulsi yang efektif memiliki bagian hidrofilik (suka air) dan lipofilik (suka minyak). Maltosa, dengan banyaknya gugus hidroksil, bersifat sangat hidrofilik dan memiliki nilai HLB yang sangat tinggi, sehingga tidak mampu menstabilkan antarmuka minyak-air secara mandiri. Sebaliknya, fungsi utamanya adalah sebagai agen peningkat viskositas (thickener) dan pengontrol aktivitas air (water activity) di fase kontinu. Dengan larut dalam air, molekul maltosa yang besar membentuk jaringan ikatan hidrogen yang ekstensif, secara signifikan meningkatkan viskositas larutan.
Peningkatan viskositas fase kontinu ini secara langsung meningkatkan stabilitas emulsi dengan mekanisme penghalang fisik. Menurut Hukum Stokes, laju pemisahan fasa (creaming atau sedimentasi) tetesan terdispersi berbanding terbalik dengan viskositas medium pendispersi. Dengan membuat fase air menjadi lebih kental, maltosa secara efektif memperlambat pergerakan Brown dari tetesan minyak, mengurangi frekuensi tumbukan di antara mereka, dan dengan demikian menghambat proses koalesensi (penggabungan tetesan) yang dapat menyebabkan pemecahan emulsi.
Selain viskositas, stabilitas emulsi juga sangat bergantung pada tolakan elektrostatik antar tetesan, yang dikuantifikasi oleh Potensial Zeta. Potensial Zeta adalah ukuran muatan permukaan efektif pada partikel koloid di dalam medium cair. Nilai Potensial Zeta yang tinggi (positif atau negatif, biasanya > |30| mV) menunjukkan adanya gaya tolak-menolak yang kuat antar tetesan, sehingga mencegah agregasi dan menjaga dispersi tetap stabil. Maltosa sebagai molekul netral tidak secara langsung berkontribusi pada muatan permukaan tetesan minyak. Namun, kehadirannya dalam konsentrasi tinggi dapat sedikit memodifikasi konstanta dielektrik dari fase air, yang pada gilirannya dapat memengaruhi jangkauan interaksi elektrostatik yang diciptakan oleh pengemulsi primer (misalnya protein atau fosfolipid).
Dalam praktiknya, maltosa (C12H22O11) bekerja secara sinergis dengan pengemulsi primer dan stabilisator lainnya. Pada mayones, misalnya, lesitin dari kuning telur bertindak sebagai pengemulsi utama yang melapisi permukaan tetesan minyak. Maltosa (atau sirupnya) ditambahkan ke fase air bersama dengan cuka dan hidrokoloid lain seperti gom xanthan. Kombinasi ini menciptakan sistem yang sangat stabil: lesitin memberikan stabilitas antarmuka, gom xanthan membentuk jaringan gel yang menjebak tetesan, dan maltosa meningkatkan viskositas dasar serta memberikan rasa dan tekstur yang diinginkan.
Mekanisme Penangkal Radikal Bebas (Antioxidant Activity) dari Maltosa
Aktivitas antioksidan didefinisikan sebagai kemampuan suatu senyawa untuk menghambat atau menunda proses oksidasi molekul lain. Oksidasi sering kali dipicu oleh radikal bebas, yaitu spesi kimia yang sangat reaktif karena memiliki elektron tidak berpasangan. Meskipun senyawa fenolik dan vitamin dikenal sebagai antioksidan kuat, karbohidrat seperti maltosa (C12H22O11) juga menunjukkan kapasitas antioksidan, meskipun dengan mekanisme dan potensi yang berbeda. Aktivitas ini menjadi relevan dalam sistem pangan di mana oksidasi lipid dapat menyebabkan ketengikan.
Mekanisme utama kerja antioksidan adalah dengan menetralkan radikal bebas melalui donasi atom hidrogen atau elektron. Radikal bebas yang berbahaya dalam sistem pangan salah satunya adalah radikal peroksil (ROO•), yang terbentuk selama tahap propagasi pada proses autoksidasi lipid. Radikal ini akan menyerang molekul lipid lain untuk mengambil atom hidrogen, sehingga menciptakan radikal lipid baru dan melanggengkan reaksi berantai yang merusak.
Maltosa (C12H22O11) memiliki banyak atom hidrogen yang terikat pada atom karbon (ikatan C-H). Beberapa dari ikatan C-H ini, terutama yang berada pada posisi anomerik atau yang berdekatan dengan atom oksigen dalam cincin, memiliki energi disosiasi ikatan yang relatif lebih rendah. Hal ini memungkinkan maltosa, dalam kondisi tertentu, untuk bertindak sebagai donor atom hidrogen (H•) bagi radikal yang sangat reaktif. Reaksi eliminasi radikal bebas ini dapat dituliskan sebagai berikut: ROO• + Maltosa-H → ROOH + Maltosa•. Dalam reaksi ini, radikal peroksil yang reaktif diubah menjadi hidroperoksida (ROOH) yang lebih stabil, dan sebuah radikal baru terbentuk pada molekul maltosa.
Kunci dari pemutusan rantai oksidasi adalah fakta bahwa radikal maltosa (Maltosa•) yang baru terbentuk jauh lebih stabil dan kurang reaktif dibandingkan radikal peroksil awal. Stabilitas ini sebagian disebabkan oleh delokalisasi elektron tidak berpasangan melalui resonansi dengan pasangan elektron bebas pada atom oksigen yang berdekatan. Radikal yang telah terstabilisasi ini cenderung tidak akan menyerang molekul lain untuk melanjutkan reaksi berantai. Sebaliknya, ia dapat mengalami reaksi terminasi lebih lanjut, misalnya dengan bereaksi dengan radikal lain, sehingga secara efektif menghentikan siklus oksidasi.
Penting untuk dicatat bahwa kontribusi antioksidan yang lebih signifikan terkait maltosa dalam makanan sering kali bukan berasal dari molekul maltosa itu sendiri, melainkan dari produk-produk yang terbentuk selama pemrosesan termal. Ketika dipanaskan bersama dengan asam amino, gugus pereduksi pada maltosa akan terlibat dalam reaksi Maillard. Reaksi kompleks ini menghasilkan berbagai senyawa, termasuk melanoidin (polimer berwarna cokelat), yang telah terbukti memiliki aktivitas antioksidan yang kuat melalui berbagai mekanisme, termasuk penangkapan radikal dan pengkelatan ion logam pro-oksidan seperti Fe2+ dan Cu+.
Aktivitas antioksidan ini, meskipun tidak sekuat senyawa fenolik, menambah dimensi fungsionalitas maltosa dalam sistem pangan. Reaktivitas kimianya tidak hanya berhenti pada interaksi dengan radikal bebas, tetapi juga meluas ke jalur metabolisme yang kompleks di dalam tubuh manusia setelah dikonsumsi.
Pemisahan dan Deteksi Maltosa dengan Kromatografi Cair Kinerja Tinggi (HPLC)
Analisis kuantitatif dan kualitatif maltosa (C12H22O11) dari matriks pangan yang kompleks, seperti produk sereal atau sirup, sering kali menghadapi tantangan akibat keberadaan senyawa pengganggu seperti protein, lemak, dan polisakarida lain. Kromatografi Cair Kinerja Tinggi (HPLC) merupakan metode pilihan yang unggul untuk pemisahan dan deteksi senyawa ini karena resolusi, sensitivitas, dan reprodusibilitasnya yang tinggi. Pemilihan fase diam dan fase gerak yang tepat menjadi kunci utama untuk mencapai isolasi maltosa (C12H22O11) yang efisien dari matriks yang rumit tersebut.
Untuk analisis karbohidrat polar seperti maltosa (C12H22O11), kolom kromatografi fase normal atau HILIC (Hydrophilic Interaction Liquid Chromatography) menjadi pilihan yang lebih superior dibandingkan kolom fase terbalik (reversed-phase) seperti C18. Kolom yang paling umum digunakan merupakan kolom amino (NH2) yang terdiri dari partikel silika yang permukaannya dimodifikasi dengan gugus aminopropil. Gugus amino (-NH2) yang bersifat basa lemah dan polar ini menyediakan situs interaksi yang ideal untuk retensi karbohidrat yang juga bersifat sangat polar.
Fase gerak yang optimal untuk pemisahan maltosa (C12H22O11) pada kolom amino atau HILIC biasanya merupakan campuran asetonitril (CH3CN) dan air deionisasi (H2O). Asetonitril (CH3CN) bertindak sebagai pelarut organik yang lemah (kurang polar), sementara air (H2O) bertindak sebagai pelarut yang kuat (sangat polar). Pemisahan yang efektif sering kali dicapai dengan menggunakan mode elusi gradien, di mana konsentrasi air (H2O) dalam fase gerak ditingkatkan secara bertahap selama analisis berlangsung.
Mekanisme retensi maltosa (C12H22O11) pada kolom HILIC didasarkan pada partisi antara fase gerak yang kaya organik dan lapisan air yang teradsorpsi pada permukaan fase diam yang polar. Maltosa (C12H22O11), dengan banyak gugus hidroksil (-OH) yang dimilikinya, bersifat sangat hidrofilik. Senyawa ini akan berinteraksi kuat melalui ikatan hidrogen dengan gugus amino (-NH2) pada fase diam dan dengan lapisan air yang terperangkap, sehingga tertahan lebih lama di dalam kolom dibandingkan senyawa yang kurang polar.
Pada awal proses elusi gradien, konsentrasi asetonitril (CH3CN) yang tinggi menyebabkan maltosa (C12H22O11) terpartisi kuat ke fase diam. Seiring dengan meningkatnya persentase air (H2O) dalam fase gerak, polaritas fase gerak secara keseluruhan meningkat. Hal ini melemahkan interaksi antara maltosa (C12H22O11) dan fase diam, menyebabkannya terelusi dari kolom. Detektor yang umum digunakan untuk karbohidrat yang tidak memiliki kromofor UV, seperti maltosa, merupakan Detektor Indeks Refraksi (RID) atau Detektor Hamburan Cahaya Evaporatif (ELSD).
Jalur Metabolisme dan Katabolisme Pencernaan Maltosa di Dalam Tubuh
| Tahap Proses | Lokasi Utama | Enzim/Transporter Terlibat | Substrat Awal | Proses Kunci | Produk Utama | Catatan Penting |
|---|---|---|---|---|---|---|
| Pencernaan Awal Pati | Rongga Mulut | Amilase saliva (ptialin) | Pati | Hidrolisis ikatan glikosidik α(1→4) | Dekstrin, Maltotriosa, Maltosa (sejumlah kecil C12H22O11) | Proses dimulai secara tidak langsung; aktivitas enzim terhenti di lambung karena pH asam. |
| Pencernaan Lanjutan Pati & Dekstrin | Usus Halus (Duodenum) | Amilase pankreas | Sisa pati dan dekstrin | Pemecahan lebih efisien sisa karbohidrat | Maltosa (sejumlah besar C12H22O11), disakarida lain | Melanjutkan pencernaan karbohidrat secara masif setelah lambung. |
| Hidrolisis Maltosa | Membran Apikal Sel Epitel Usus Halus (Brush Border) | Maltase (α-glukosidase, bagian dari kompleks maltase-glukoamilase) | Maltosa (C12H22O11) | Hidrolisis spesifik ikatan glikosidik α(1→4) | Dua molekul Glukosa (C6H12O6) | Enzim terikat pada membran, tidak disekresikan ke lumen usus. |
| Absorpsi Glukosa (Lumen ke Sel) | Membran Apikal Enterosit | SGLT1 (Sodium-Glucose Cotransporter 1) | Glukosa (C6H12O6) dan Ion Natrium (Na+) | Transpor aktif sekunder | Glukosa di dalam sitoplasma enterosit | Memindahkan satu molekul glukosa bersama dengan satu ion Na+. |
| Absorpsi Glukosa (Sel ke Darah) | Membran Basolateral Enterosit | GLUT2 (Glucose Transporter 2) | Glukosa (C6H12O6) dari sitoplasma enterosit | Difusi terfasilitasi | Glukosa di kapiler darah (aliran darah) | Memfasilitasi distribusi glukosa ke seluruh jaringan tubuh. |
| Pemanfaatan Glukosa sebagai Energi | Sel-sel Tubuh | Enzim jalur Glikolisis & Respirasi Seluler | Glukosa (C6H12O6) | Glikolisis, Respirasi Seluler (katabolisme aerobik) | Energi (ATP) | Glukosa digunakan sebagai sumber energi utama. |
| Ekskresi Produk Akhir Katabolisme | Sel-sel Tubuh, Sistem Pernapasan | (Implisit dari respirasi seluler) | Glukosa (C6H12O6) | Katabolisme sempurna dalam kondisi aerobik | Karbondioksida (CO2), Air (H2O) | CO2 diekskresikan melalui pernapasan, H2O bergabung dengan air metabolik tubuh. |
Proses pencernaan maltosa (C12H22O11) sejatinya dimulai secara tidak langsung di dalam rongga mulut. Ketika kita mengonsumsi makanan yang mengandung pati, seperti nasi atau roti, enzim amilase saliva (ptialin) mulai bekerja. Enzim ini menginisiasi hidrolisis ikatan glikosidik α(1→4) pada molekul pati yang besar, memecahnya menjadi fragmen-fragmen yang lebih kecil, termasuk dekstrin, maltotriosa, dan sejumlah kecil disakarida maltosa (C12H22O11).
Perjalanan bolus makanan ke lambung menghentikan sementara aktivitas amilase saliva akibat lingkungan yang sangat asam (pH rendah). Proses pencernaan karbohidrat kemudian dilanjutkan secara masif di usus halus. Pankreas melepaskan enzim amilase pankreas ke dalam duodenum, yang memiliki efisiensi lebih tinggi dalam memecah sisa pati dan dekstrin. Aktivitas enzim ini menghasilkan sejumlah besar disakarida, dengan maltosa (C12H22O11) menjadi salah satu produk utamanya.
Di sinilah peran sentral enzim spesifik untuk maltosa (C12H22O11) dimulai. Enzim yang bertanggung jawab untuk pencernaan akhir disakarida ini merupakan maltase, yang secara teknis merupakan bagian dari kompleks enzim maltase-glukoamilase. Enzim ini tidak disekresikan ke dalam lumen usus, melainkan terikat pada membran apikal sel-sel epitel usus halus, yang dikenal sebagai brush border atau tepi sikat.
Secara biokimia, enzim maltase (suatu α-glukosidase) mengkatalisis reaksi hidrolisis yang sangat spesifik. Enzim ini menargetkan dan memutus ikatan glikosidik α(1→4) yang menghubungkan dua unit glukosa dalam satu molekul maltosa (C12H22O11). Hasil dari reaksi hidrolisis ini merupakan pembebasan dua molekul monosakarida yang identik, yaitu glukosa (C6H12O6), yang siap untuk diserap oleh tubuh.
Setelah maltosa (C12H22O11) dipecah, dua molekul glukosa (C6H12O6) yang dihasilkan segera diabsorpsi masuk ke dalam sel usus (enterosit). Proses penyerapan ini merupakan transpor aktif sekunder yang dimediasi oleh transporter SGLT1 (Sodium-Glucose Cotransporter 1). Transporter ini secara simultan memindahkan satu molekul glukosa (C6H12O6) bersama dengan ion natrium (Na+) melintasi membran apikal enterosit.
Dari dalam sitoplasma enterosit, glukosa (C6H12O6) harus melanjutkan perjalanannya menuju aliran darah untuk dapat didistribusikan ke seluruh jaringan tubuh. Proses ini difasilitasi oleh transporter lain, yaitu GLUT2 (Glucose Transporter 2), yang terletak di membran basolateral enterosit. Melalui difusi terfasilitasi, GLUT2 mengangkut glukosa (C6H12O6) keluar dari sel menuju kapiler darah di vili usus.
Begitu berada di dalam sirkulasi darah, glukosa (C6H12O6) akan digunakan oleh sel-sel tubuh sebagai sumber energi utama melalui jalur glikolisis dan respirasi seluler. Apabila dikatabolisme secara sempurna dalam kondisi aerobik, setiap molekul glukosa akan menghasilkan energi (ATP), dan senyawa akhir yang diekskresikan oleh tubuh merupakan karbondioksida (CO2) melalui sistem pernapasan dan air (H2O) yang bergabung dengan air metabolik tubuh.
Imunologi Pangan: Struktur Molekul Maltosa sebagai Pemicu Alergenisitas
Secara fundamental, molekul maltosa (C12H22O11) itu sendiri bukanlah pemicu alergi. Sebagai disakarida dengan berat molekul rendah, ia tergolong sebagai hapten, yaitu molekul kecil yang tidak mampu memicu respons imun secara mandiri. Alergenisitas yang terkait dengan pangan bermaltosa hampir selalu berasal dari protein yang lebih besar yang ada bersamaan dalam matriks makanan, di mana maltosa (C12H22O11) dapat memainkan peran sekunder.
Koneksi imunologis dapat terjadi ketika residu karbohidrat, termasuk unit yang mirip maltosa, terikat secara kovalen pada protein melalui proses yang disebut glikosilasi. Protein yang termodifikasi ini, dikenal sebagai glikoprotein, dapat menjadi alergen yang poten. Dalam kasus ini, sistem imun tidak mengenali maltosa (C12H22O11) secara tunggal, melainkan mengenali konformasi tiga dimensi dari keseluruhan glikoprotein, di mana struktur peptida dari protein tersebut merupakan penentu epitop utama.
Pada individu yang memiliki predisposisi alergi, paparan pertama terhadap glikoprotein alergenik ini akan memicu fase sensitisasi. Sel penyaji antigen (APC), seperti sel dendritik, akan menelan dan memproses alergen tersebut. Fragmen peptida dari alergen (epitop) kemudian disajikan pada permukaannya kepada sel T helper, yang selanjutnya mengaktifkan sel B untuk memproduksi antibodi spesifik dari kelas Imunoglobulin E (IgE).
Antibodi IgE yang baru diproduksi ini kemudian bersirkulasi dalam darah dan menempel pada reseptor afinitas tinggi di permukaan sel mast dan basofil. Sel-sel ini, yang kini “dipersenjatai” dengan IgE, menjadi sangat sensitif terhadap alergen tersebut. Individu tersebut sekarang berada dalam kondisi tersensitisasi, meskipun belum menunjukkan gejala alergi apa pun pada tahap ini.
Reaksi alergi yang sesungguhnya baru terjadi pada paparan berikutnya. Ketika individu yang tersensitisasi kembali mengonsumsi makanan yang mengandung glikoprotein alergenik tersebut, molekul alergen akan melakukan ikatan silang (cross-linking) dengan dua atau lebih molekul IgE yang terikat pada permukaan sel mast. Peristiwa ikatan silang ini merupakan sinyal kuat yang memicu degranulasi sel mast, yaitu pelepasan granul-granul yang berisi mediator inflamasi poten seperti histamin, protease, dan sitokin.
Pemahaman ini menggarisbawahi bahwa signifikansi imunologis dari sebuah molekul karbohidrat seperti maltosa (C12H22O11) tidak dapat dievaluasi secara terisolasi. Sebaliknya, peranannya harus dipertimbangkan dalam konteks interaksinya yang kompleks dengan makromolekul lain, terutama protein, dalam suatu matriks pangan yang dapat memodulasi pengenalan oleh sistem imun.
Pemisahan dan Deteksi Maltosa dengan Kromatografi Cair Kinerja Tinggi (HPLC)
Analisis kuantitatif dan kualitatif maltosa (C12H22O11) dari matriks pangan yang kompleks, seperti produk sereal atau sirup, sering kali menghadapi tantangan akibat keberadaan senyawa pengganggu seperti protein, lemak, dan polisakarida lain. Kromatografi Cair Kinerja Tinggi (HPLC) merupakan metode pilihan yang unggul untuk pemisahan dan deteksi senyawa ini karena resolusi, sensitivitas, dan reprodusibilitasnya yang tinggi. Pemilihan fase diam dan fase gerak yang tepat menjadi kunci utama untuk mencapai isolasi maltosa (C12H22O11) yang efisien dari matriks yang rumit tersebut.
Untuk analisis karbohidrat polar seperti maltosa (C12H22O11), kolom kromatografi fase normal atau HILIC (Hydrophilic Interaction Liquid Chromatography) menjadi pilihan yang lebih superior dibandingkan kolom fase terbalik (reversed-phase) seperti C18. Kolom yang paling umum digunakan merupakan kolom amino (NH2) yang terdiri dari partikel silika yang permukaannya dimodifikasi dengan gugus aminopropil. Gugus amino (-NH2) yang bersifat basa lemah dan polar ini menyediakan situs interaksi yang ideal untuk retensi karbohidrat yang juga bersifat sangat polar.
Fase gerak yang optimal untuk pemisahan maltosa (C12H22O11) pada kolom amino atau HILIC biasanya merupakan campuran asetonitril (CH3CN) dan air deionisasi (H2O). Asetonitril (CH3CN) bertindak sebagai pelarut organik yang lemah (kurang polar), sementara air (H2O) bertindak sebagai pelarut yang kuat (sangat polar). Pemisahan yang efektif sering kali dicapai dengan menggunakan mode elusi gradien, di mana konsentrasi air (H2O) dalam fase gerak ditingkatkan secara bertahap selama analisis berlangsung.
Mekanisme retensi maltosa (C12H22O11) pada kolom HILIC didasarkan pada partisi antara fase gerak yang kaya organik dan lapisan air yang teradsorpsi pada permukaan fase diam yang polar. Maltosa (C12H22O11), dengan banyak gugus hidroksil (-OH) yang dimilikinya, bersifat sangat hidrofilik. Senyawa ini akan berinteraksi kuat melalui ikatan hidrogen dengan gugus amino (-NH2) pada fase diam dan dengan lapisan air yang terperangkap, sehingga tertahan lebih lama di dalam kolom dibandingkan senyawa yang kurang polar.
Pada awal proses elusi gradien, konsentrasi asetonitril (CH3CN) yang tinggi menyebabkan maltosa (C12H22O11) terpartisi kuat ke fase diam. Seiring dengan meningkatnya persentase air (H2O) dalam fase gerak, polaritas fase gerak secara keseluruhan meningkat. Hal ini melemahkan interaksi antara maltosa (C12H22O11) dan fase diam, menyebabkannya terelusi dari kolom. Detektor yang umum digunakan untuk karbohidrat yang tidak memiliki kromofor UV, seperti maltosa, merupakan Detektor Indeks Refraksi (RID) atau Detektor Hamburan Cahaya Evaporatif (ELSD).
Jalur Metabolisme dan Katabolisme Pencernaan Maltosa di Dalam Tubuh
Proses pencernaan maltosa (C12H22O11) sejatinya dimulai secara tidak langsung di dalam rongga mulut. Ketika kita mengonsumsi makanan yang mengandung pati, seperti nasi atau roti, enzim amilase saliva (ptialin) mulai bekerja. Enzim ini menginisiasi hidrolisis ikatan glikosidik α(1→4) pada molekul pati yang besar, memecahnya menjadi fragmen-fragmen yang lebih kecil, termasuk dekstrin, maltotriosa, dan sejumlah kecil disakarida maltosa (C12H22O11).
Perjalanan bolus makanan ke lambung menghentikan sementara aktivitas amilase saliva akibat lingkungan yang sangat asam (pH rendah). Proses pencernaan karbohidrat kemudian dilanjutkan secara masif di usus halus. Pankreas melepaskan enzim amilase pankreas ke dalam duodenum, yang memiliki efisiensi lebih tinggi dalam memecah sisa pati dan dekstrin. Aktivitas enzim ini menghasilkan sejumlah besar disakarida, dengan maltosa (C12H22O11) menjadi salah satu produk utamanya.
Di sinilah peran sentral enzim spesifik untuk maltosa (C12H22O11) dimulai. Enzim yang bertanggung jawab untuk pencernaan akhir disakarida ini merupakan maltase, yang secara teknis merupakan bagian dari kompleks enzim maltase-glukoamilase. Enzim ini tidak disekresikan ke dalam lumen usus, melainkan terikat pada membran apikal sel-sel epitel usus halus, yang dikenal sebagai brush border atau tepi sikat.
Secara biokimia, enzim maltase (suatu α-glukosidase) mengkatalisis reaksi hidrolisis yang sangat spesifik. Enzim ini menargetkan dan memutus ikatan glikosidik α(1→4) yang menghubungkan dua unit glukosa dalam satu molekul maltosa (C12H22O11). Hasil dari reaksi hidrolisis ini merupakan pembebasan dua molekul monosakarida yang identik, yaitu glukosa (C6H12O6), yang siap untuk diserap oleh tubuh.
Setelah maltosa (C12H22O11) dipecah, dua molekul glukosa (C6H12O6) yang dihasilkan segera diabsorpsi masuk ke dalam sel usus (enterosit). Proses penyerapan ini merupakan transpor aktif sekunder yang dimediasi oleh transporter SGLT1 (Sodium-Glucose Cotransporter 1). Transporter ini secara simultan memindahkan satu molekul glukosa (C6H12O6) bersama dengan ion natrium (Na+) melintasi membran apikal enterosit.
Dari dalam sitoplasma enterosit, glukosa (C6H12O6) harus melanjutkan perjalanannya menuju aliran darah untuk dapat didistribusikan ke seluruh jaringan tubuh. Proses ini difasilitasi oleh transporter lain, yaitu GLUT2 (Glucose Transporter 2), yang terletak di membran basolateral enterosit. Melalui difusi terfasilitasi, GLUT2 mengangkut glukosa (C6H12O6) keluar dari sel menuju kapiler darah di vili usus.
Begitu berada di dalam sirkulasi darah, glukosa (C6H12O6) akan digunakan oleh sel-sel tubuh sebagai sumber energi utama melalui jalur glikolisis dan respirasi seluler. Apabila dikatabolisme secara sempurna dalam kondisi aerobik, setiap molekul glukosa akan menghasilkan energi (ATP), dan senyawa akhir yang diekskresikan oleh tubuh merupakan karbondioksida (CO2) melalui sistem pernapasan dan air (H2O) yang bergabung dengan air metabolik tubuh.
Imunologi Pangan: Struktur Molekul Maltosa sebagai Pemicu Alergenisitas
Secara fundamental, molekul maltosa (C12H22O11) itu sendiri bukanlah pemicu alergi. Sebagai disakarida dengan berat molekul rendah, ia tergolong sebagai hapten, yaitu molekul kecil yang tidak mampu memicu respons imun secara mandiri. Alergenisitas yang terkait dengan pangan bermaltosa hampir selalu berasal dari protein yang lebih besar yang ada bersamaan dalam matriks makanan, di mana maltosa (C12H22O11) dapat memainkan peran sekunder.
Koneksi imunologis dapat terjadi ketika residu karbohidrat, termasuk unit yang mirip maltosa, terikat secara kovalen pada protein melalui proses yang disebut glikosilasi. Protein yang termodifikasi ini, dikenal sebagai glikoprotein, dapat menjadi alergen yang poten. Dalam kasus ini, sistem imun tidak mengenali maltosa (C12H22O11) secara tunggal, melainkan mengenali konformasi tiga dimensi dari keseluruhan glikoprotein, di mana struktur peptida dari protein tersebut merupakan penentu epitop utama.
Pada individu yang memiliki predisposisi alergi, paparan pertama terhadap glikoprotein alergenik ini akan memicu fase sensitisasi. Sel penyaji antigen (APC), seperti sel dendritik, akan menelan dan memproses alergen tersebut. Fragmen peptida dari alergen (epitop) kemudian disajikan pada permukaannya kepada sel T helper, yang selanjutnya mengaktifkan sel B untuk memproduksi antibodi spesifik dari kelas Imunoglobulin E (IgE).
Antibodi IgE yang baru diproduksi ini kemudian bersirkulasi dalam darah dan menempel pada reseptor afinitas tinggi di permukaan sel mast dan basofil. Sel-sel ini, yang kini “dipersenjatai” dengan IgE, menjadi sangat sensitif terhadap alergen tersebut. Individu tersebut sekarang berada dalam kondisi tersensitisasi, meskipun belum menunjukkan gejala alergi apa pun pada tahap ini.
Reaksi alergi yang sesungguhnya baru terjadi pada paparan berikutnya. Ketika individu yang tersensitisasi kembali mengonsumsi makanan yang mengandung glikoprotein alergenik tersebut, molekul alergen akan melakukan ikatan silang (cross-linking) dengan dua atau lebih molekul IgE yang terikat pada permukaan sel mast. Peristiwa ikatan silang ini merupakan sinyal kuat yang memicu degranulasi sel mast, yaitu pelepasan granul-granul yang berisi mediator inflamasi poten seperti histamin, protease, dan sitokin.
Pemahaman ini menggarisbawahi bahwa signifikansi imunologis dari sebuah molekul karbohidrat seperti maltosa (C12H22O11) tidak dapat dievaluasi secara terisolasi. Sebaliknya, peranannya harus dipertimbangkan dalam konteks interaksinya yang kompleks dengan makromolekul lain, terutama protein, dalam suatu matriks pangan yang dapat memodulasi pengenalan oleh sistem imun.
Life Cycle Assessment (LCA): Analisis Emisi Gas Rumah Kaca dalam Sintesis Maltosa
Analisis Siklus Hidup atau Life Cycle Assessment (LCA) merupakan kerangka kerja esensial untuk mengkuantifikasi dampak lingkungan dari produksi maltosa (C12H22O11), dari akuisisi bahan baku hingga gerbang pabrik (cradle-to-gate). Proses ini secara sistematis melacak input energi, penggunaan air, dan output emisi. Untuk maltosa (C12H22O11), LCA berfokus pada jejak karbon yang timbul dari pertanian sumber pati (seperti jagung atau jelai), proses hidrolisis enzimatik atau asam, serta tahap pemurnian dan pengeringan produk akhir menjadi bentuk sirup atau bubuk.
Konsumsi energi fosil menjadi salah satu titik panas (hotspot) lingkungan utama dalam produksi maltosa (C12H22O11). Proses hidrolisis pati, yang mengubah polisakarida menjadi disakarida, memerlukan input energi termal yang signifikan untuk mempertahankan suhu reaktor yang optimal, biasanya antara 60-95 °C untuk hidrolisis enzimatik. Energi ini mayoritas bersumber dari pembakaran gas alam atau batu bara. Selain itu, proses hilir seperti evaporasi untuk mengkonsentrasikan sirup dan pengeringan semprot (spray drying) untuk menghasilkan bubuk maltosa (C12H22O11) juga sangat intensif energi, berkontribusi secara substansial terhadap total jejak energi produk.
Pemanfaatan bahan baku, meskipun berbasis sumber terbarukan seperti pati, tetap menyumbang jejak lingkungan yang tidak dapat diabaikan. Pertanian jagung atau gandum secara intensif memerlukan pupuk nitrogen sintetik, yang produksinya melepaskan gas rumah kaca dan aplikasinya di lapangan dapat menghasilkan emisi dinitrogen oksida (N2O), sebuah gas dengan potensi pemanasan global hampir 300 kali lipat dari karbon dioksida (CO2). Penggunaan mesin pertanian bertenaga diesel juga menambah emisi partikulat dan CO2 ke atmosfer, yang harus diperhitungkan dalam analisis siklus hidup maltosa (C12H22O11).
Secara kuantitatif, emisi gas rumah kaca diukur dalam satuan ekuivalen karbon dioksida (CO2e) per ton produk. Estimasi menunjukkan bahwa produksi satu ton maltosa (C12H22O11) dapat menghasilkan antara 0.5 hingga 1.5 ton CO2e, tergantung pada efisiensi pabrik, sumber energi yang digunakan, dan praktik pertanian dari mana bahan baku berasal. Angka ini menyoroti pentingnya optimisasi proses, seperti penggunaan enzim termostabil yang lebih efisien atau integrasi sumber energi terbarukan, untuk menekan jejak karbon dari senyawa pemanis penting ini.
Strategi mitigasi dalam kerangka LCA untuk produksi maltosa (C12H22O11) mencakup beberapa area intervensi. Di tingkat hulu, promosi pertanian regeneratif dan presisi dapat mengurangi kebutuhan pupuk dan bahan bakar fosil. Di tingkat pabrik, investasi pada sistem kogenerasi (Combined Heat and Power), pemanfaatan kembali panas limbah, dan transisi ke sumber energi bersih seperti biomassa atau energi surya termal dapat secara drastis menurunkan emisi CO2. Peningkatan efisiensi proses melalui rekayasa enzim dan optimisasi parameter reaktor juga merupakan kunci untuk produksi maltosa (C12H22O11) yang lebih berkelanjutan.
Konsep Green Technology: Pengembangan Alternatif Bahan Pangan Berkelanjutan untuk Maltosa
Seiring meningkatnya kesadaran akan kesehatan dan keberlanjutan, teknologi hijau kini diarahkan untuk mengembangkan alternatif pengganti maltosa (C12H22O11) yang lebih fungsional dan ramah bagi tubuh. Fokus utamanya bukan hanya meniru rasa manis, tetapi juga mereplikasi sifat-sifat fisikokimia krusial seperti kemampuan sebagai agen pembentuk massa (bulking agent), kontribusi terhadap tekstur, dan perannya dalam reaksi pencoklatan Maillard. Inovasi ini bertujuan menciptakan bahan yang setara secara teknologi pangan namun dengan profil nutrisi yang superior, seperti indeks glikemik rendah atau nol kalori.
Salah satu pendekatan yang paling menjanjikan merupakan desain molekuler inovatif. Para ilmuwan pangan merancang molekul oligosakarida baru dengan memodifikasi ikatan glikosidik yang menghubungkan unit-unit monosakarida. Tidak seperti ikatan α-(1→4) pada maltosa (C12H22O11) yang mudah dihidrolisis oleh enzim pencernaan manusia, ikatan alternatif seperti β-(1→3) atau α-(1→1) menunjukkan resistensi terhadap pencernaan. Hasilnya adalah senyawa yang memberikan rasa manis dan volume tetapi melewati usus kecil tanpa diserap, sehingga tidak berkontribusi pada kalori atau lonjakan gula darah.
Analog alami berbasis protein tumbuhan juga menjadi area riset yang aktif. Protein manis seperti thaumatin dan monellin, yang diekstraksi dari tanaman tropis, memiliki tingkat kemanisan ratusan hingga ribuan kali lipat dari sukrosa. Tantangan utamanya adalah protein-protein ini tidak memiliki massa dan sifat tekstur seperti maltosa (C12H22O11). Solusi teknologi hijau melibatkan rekayasa protein tersebut atau mengkombinasikannya dengan serat pangan larut seperti inulin atau polidekstrosa untuk membangun struktur dan mouthfeel yang diinginkan, meniru fungsi ganda maltosa (C12H22O11) dalam produk makanan.
Teknik enkapsulasi, baik pada skala mikro maupun nano, menawarkan strategi cerdas untuk substitusi fungsional. Dengan metode ini, pemanis berintensitas tinggi dalam jumlah sangat kecil dapat dienkapsulasi di dalam matriks pembawa yang bersifat inert dan tidak dapat dicerna, misalnya selulosa atau alginat. Partikel hasil enkapsulasi ini dirancang untuk memiliki ukuran dan densitas yang mirip dengan kristal maltosa (C12H22O11), sehingga dapat didistribusikan secara merata dalam adonan atau campuran kering dan memberikan kontribusi pada volume produk akhir tanpa menambah kalori secara signifikan.
Sintesis enzimatik menjadi tulang punggung dalam penciptaan banyak alternatif ini, sejalan dengan prinsip kimia hijau. Enzim seperti transglukosidase atau fruktosiltransferase digunakan sebagai katalis yang sangat spesifik untuk membangun molekul gula kompleks dari substrat yang lebih sederhana. Proses ini, yang berlangsung dalam kondisi ringan (suhu dan tekanan rendah), memungkinkan kontrol presisi atas struktur molekul akhir, menghasilkan isomer atau oligosakarida fungsional yang tidak mudah ditemukan di alam atau sulit disintesis melalui metode kimia konvensional yang lebih keras.
Penggunaan serat pangan fungsional sebagai pengganti parsial atau total untuk maltosa (C12H22O11) juga merupakan strategi yang sangat relevan. Senyawa seperti fruktooligosakarida (FOS) dan galaktooligosakarida (GOS) tidak hanya memberikan sedikit rasa manis dan volume, tetapi juga berfungsi sebagai prebiotik yang mendukung kesehatan mikrobioma usus. Kombinasi serat ini dengan pemanis alami berintensitas tinggi dapat menciptakan sinergi fungsional, secara efektif menggantikan peran teknis dari maltosa (C12H22O11) sambil menambahkan nilai manfaat kesehatan yang tidak dimiliki oleh disakarida tersebut.
Meskipun demikian, tantangan terbesar dalam pengembangan alternatif ini adalah mereplikasi kemampuan reaksi Maillard, yang menjadi ciri khas gula pereduksi seperti maltosa (C12H22O11). Reaksi ini, yang menghasilkan warna keemasan dan aroma khas pada produk panggangan, bergantung pada adanya gugus karbonil bebas. Banyak alternatif rendah kalori bersifat non-pereduksi. Oleh karena itu, riset terkini berfokus pada desain molekul hibrida yang menggabungkan struktur tahan cerna dengan gugus fungsional reaktif atau penggunaan bahan tambahan alami yang kaya akan asam amino untuk memfasilitasi reaksi pencoklatan yang serupa.
Setelah menelaah jejak lingkungan dari produksi maltosa (C12H22O11) dan membedah berbagai potensi inovasi teknologi hijau untuk substitusinya, terlihat jelas bahwa pergeseran paradigma dalam industri pemanis sedang berlangsung. Evolusi ini tidak hanya didorong oleh permintaan konsumen akan produk yang lebih sehat, tetapi juga oleh kebutuhan mendesak untuk menciptakan sistem pangan yang lebih berkelanjutan. Analisis selanjutnya akan mendalami aspek regulatori dan sensoris yang menjadi faktor krusial dalam menentukan keberhasilan komersial dan penerimaan pasar terhadap alternatif-alternatif canggih ini.
Pertanyaan Umum (FAQ)
Apa saja faktor utama yang menyumbang jejak karbon dalam produksi maltosa?
Mengapa pengembangan alternatif maltosa perlu memperhatikan reaksi Maillard?
Bagaimana teknologi enkapsulasi membantu dalam mencari pengganti maltosa?
Apa peran sintesis enzimatik dalam pengembangan bahan pangan berkelanjutan?
Kesimpulan
Produksi maltosa (C12H22O11) memiliki ketergantungan energi yang tinggi, terutama pada tahap hidrolisis enzimatik, evaporasi, dan pengeringan. Analisis Siklus Hidup (LCA) menunjukkan bahwa jejak lingkungan dari senyawa ini dipengaruhi oleh sumber energi fosil yang digunakan serta proses pertanian bahan baku yang menghasilkan emisi gas rumah kaca. Oleh karena itu, strategi mitigasi seperti penggunaan energi terbarukan, optimisasi reaktor, dan penerapan pertanian regeneratif menjadi langkah vital untuk meningkatkan keberlanjutan produksi.
Di sisi lain, inovasi teknologi hijau terus berkembang untuk menciptakan alternatif maltosa yang lebih sehat dan fungsional. Melalui desain molekuler, pemanfaatan serat pangan, dan teknik enkapsulasi, para ilmuwan berupaya mereplikasi sifat fisikokimia maltosa, seperti kemampuan sebagai agen pembentuk massa dan peran dalam reaksi Maillard. Upaya ini mencerminkan pergeseran paradigma industri menuju sistem pangan yang lebih berkelanjutan dan responsif terhadap kebutuhan kesehatan konsumen masa kini.
Referensi
Bagi Anda yang ingin menyelami lebih dalam mengenai Maltosa, berikut adalah beberapa sumber referensi terpercaya yang dapat menjadi panduan untuk memahami karakteristik, sifat, penggunaan, serta informasi ilmiah terkait senyawa tersebut.
- PubChem. “Maltose.” National Center for Biotechnology Information (NCBI). https://pubchem.ncbi.nlm.nih.gov/compound/Maltose
- National Institute of Standards and Technology (NIST). “Maltose.” NIST Chemistry WebBook, SRD 69. https://webbook.nist.gov/cgi/cbook.cgi?ID=C69794
- Royal Society of Chemistry (RSC). “Maltose – Compound Summary.” ChemSpider. http://www.chemspider.com/Chemical-Structure.439537.html
- European Chemicals Agency (ECHA). “Substance Information: Maltose.” ECHA Database. https://echa.europa.eu/substance-information/-/substanceinfo/100.006.840
- Nelson, D. L., & Cox, M. M. “Lehninger Principles of Biochemistry” (7th ed.). W.H. Freeman and Company, 2017.
- Robyt, J. F. “Essentials of Carbohydrate Chemistry.” Springer Science & Business Media, 1998.
- Wang, Y., et al. “Maltose: Biosynthesis, applications, and future perspectives.” Journal of Agricultural and Food Chemistry, 2021. https://doi.org/10.1021/acs.jafc.1c03456
Untuk memperoleh informasi yang lebih lengkap dan mutakhir, disarankan untuk memeriksa sumber ilmiah dan database resmi yang tersedia, termasuk publikasi terbaru apabila diperlukan.
Related posts